

PARTE Ⅰ: L'infezione da SARS-CoV-2 colpisce i tessuti, inclusi cuore e reni
Mar 18, 2022
per ulteriori informazioni:ali.ma@wecistanche.com
PARTE Ⅰ: L'infezione da SARS-CoV-2 nel modello di criceto siriano provoca infiammazione e disregolazione dell'interferone di tipo I sia nei tessuti respiratori che in quelli non respiratori, inclusi cuore e reni
Magen Ellen Francis, Una Goncin & et al.
introduzione
SARS-CoV-2(acuto graverespiratoriocoronavirus 2) che causa il COVID-19 (coronavirus 2019) è emerso alla fine del 2019 con conseguenti enormi impatti sulla salute pubblica e sull'economia[1,2].SARS-CoV-2è un virus a RNA a singolo filamento a senso positivo della famiglia Coronoviridae, genere Betacoronavirus[3], e dalla sua comparsa ha portato a oltre 170 milioni di casi confermati e 3,5 milioni di decessi in tutto il mondo a partire dal 1 giugno 2021 [4]. Sebbene in precedenza si pensasse che le infezioni da coronavirus negli esseri umani causassero solo sintomi lievi simili al raffreddore, i coronavirus più recenti ad emergere, SARS-CoV (severe acuterespiratoriocoronavirus) e MERS-CoV (Medio Orienterespiratoriosindrome da coronavirus), sono associati a una vasta gamma direspiratorioe sintomi non respiratori[5,6], da lievi a gravi, che portano a insufficienza d'organo e morte [Z. Sono stati segnalati anche casi asintomatici[8]. Dato l'onere per la salute pubblica, nonché la gamma di gravità della malattia, lo sviluppo di modelli animali da studiareSARS-CoV-2patogenesi e identificare le contromisure è di grande importanza. La valutazione in vivo della risposta dell'ospite all'infezione virale è essenziale per identificare i fattori dell'ospite che regolano la malattia grave, nonché i biomarcatori che possono aiutare a informare le misure di terapia di supporto del paziente.
Valutazione della risposta dell'ospite aSARS-CoV-2ha portato a preziose informazioni sulla progressione della malattia e sui possibili meccanismi immunitari che portano a malattie gravi. È stato ampiamente dimostrato che i casi gravi di COVID-19 nell'uomo sono spesso accompagnati da una maggiore espressione di geni infiammatori, tra cui l'interleuchina-6(IL-6), l'interleuchina-1 beta(IL-1beta) e fattore di necrosi tumorale (TNF) [9-11]. Precedente aSARS-CoV-2, era noto che i coronavirus erano in grado di regolare la risposta all'interferone di tipo I[12,13]. Diversi studi hanno scoperto che le risposte dell'interferone di tipo I sono significativamente attenuate duranteSARS-CoV-2infezione suggerendo che ciò potrebbe anche contribuire a scarsi risultati COVID-19[14,15]. Questi dati clinici suggeriscono potenziali marcatori di patogenesi per ulteriori indagini sperimentali.
I criceti siriani erano una delle poche specie animali identificate all'inizio della pandemia per essere infettate in modo produttivo daSARS-CoV-2e di potenziale utilizzo per lo sviluppo preclinico e l'analisi in vivo[l6]. I criceti sono stati originariamente determinati per essere suscettibili alla SARS-CoV [17] e da allora hanno dimostrato di essere un modello perSARS-CoV-2[18]. I criceti sono in grado di supportareSARS-CoV-2replicazione nell'inferiorerespiratoriotratto[18-20] con alcune somiglianze con l'infezione e la dinamica della malattia come quella degli esseri umani, sebbene il decorso del tempo di infezione sembri essere più breve nei criceti[21]. Non è stato dimostrato che i furetti supportino l'infezione all'interno del polmone poiché il virus è stato rilevato solo nella parte superiorerespiratoriotratto che suggerisce che questo modello può essere utile per studi di trasmissione[22]. Inoltre, non è stato dimostrato che i topi siano suscettibili al Wuhan originaleSARS-CoV-2virus. È stato anche dimostrato che i criceti generano un'efficace risposta anticorpale e sono stati utilizzati sia per il vaccino COVID-19 che per studi terapeutici[19,20,23]. Come per altri modelli animali non tradizionali, mancano reagenti biologici specifici per criceti per caratterizzare le risposte immunitarie ei meccanismi di patogenesi[24].
Qui, abbiamo studiato la risposta immunitaria e la patogenesi diSARS-CoV-2infezione nei criceti per determinare i meccanismi della malattia e il coinvolgimento di organi specifici come i polmoni,cuore, erenepoiché COVID-19 è una malattia multisistemica.SARS-CoV-2criceti siriani inoculati sono stati campionati in un 15-corso giornaliero per analisi virologiche e immunologiche mediante qRT-PCR, analisi del trascrittoma, test di titolazione del virus e immunoistochimica (IHC). Ilrespiratoriotratto ha avuto un elevato carico di replicazione del virus sia nella regione superiore che in quella inferiore con uno specifico smussamento della risposta all'interferone di tipo I. Mentre abbiamo trovato poche prove di virus infettivo al di fuori delrespiratoriotratto, l'RNA virale era presente in diversi organi tra cui ilreni, cuore, linfonodo e fegato con concomitante espressione di mediatori dell'infiammazione come IL-6, TNF e IL-1beta. Il polmone, così come gli organi extrapolmonari, mostravano segni di infiltrazione di cellule infiammatorie che portavano a danni ai tessuti. Presi insieme, abbiamo definito il modello di immunopatogenesi del criceto nel contesto di COVID-19 che può essere utilizzato per identificare i correlati di protezione e malattia, per la valutazione delle contromisure mediche.

Clicca per cistanche effetti per malattie renali
Risultati
SARS-CoV-2-i criceti inoculati hanno una perdita di peso correlata alla carica virale, virus infettivo nelrespiratoriotratto e RNA virale nei tessuti non respiratori
I criceti siriani sono suscettibili alle infezioniSARS-CoV-2suggerendo che potrebbero essere utili per lo studio dell'immunopatologia e dei meccanismi della malattia[20]. I criceti hanno un'età di 6-8 settimane con cui sono stati inoculati per via nasaleSARS-CoV-2 at 10° TCIDs0. The animals were monitored for temperature and weight throughout the course of the infection. As typical during viral infection in small animals, hamsters began showing a decrease in temperature by day 1 post-inoculation(pi)(S1A Fig)which returned to baseline between day 3 and 7 (S1B Fig). Inoculated hamsters began losing weight on day 2 pi, with weights being significantly different from baseline on days 3 to 7. Weight loss was most severe on day 6 pi where the average body weight of the inoculated animals was 88.26% of the original weight (Fig 1A). After day 6, there was a steady increase in weight over the remaining time course on average recovering to baseline by day 12. Individual animals showed two different trajectories of weight loss: mild (~4%weight loss) and severe(>15 percento di perdita di peso)(Fig1B). Nessun animale ha perso più del 20 percento del suo peso originale e ha raggiunto anche altri criteri per l'endpoint umano come definito nei metodi durante lo studio. Gli animali sono stati rimossi dallo studio a giorni finali predeterminati per la raccolta del campione, pertanto i pesi individuali per tutti gli animali non sono mostrati.

Il COVID{0}} colpisce diversi sistemi di organi nell'uomo, tra cui ilcuore, reni, fegato, milza e intestino crasso[25,26]. Pertanto, eravamo interessati a determinare il tropismo del virus e l'immunopatologia associata in tutto il corpo dei criceti infetti per ottenere informazioni sulla malattia. Gli animali sono stati rimossi dallo studio nei giorni 0, 2,5,8,12 e 15pi per valutare le risposte tessuto-specifiche per l'autopsia e l'analisi dell'immunopatologia. Sangue, lavaggi nasali e tessuti (respiratorioe non respiratoria) sono stati raccolti. Il tropismo virale è stato valutato mediante qRT-PCR per ilSARS-CoV-2titolazione del gene dell'involucro (E) e del virus con i test della dose infettiva 50 (TCIDs0) di coltura tissutale (Fig2). L'analisi dell'espressione genica E è rappresentata da cerchi marroni sui grafici. Analisi delrespiratorioil tratto ha rivelato vRNA presente nei turbinati nasali, nella trachea e in tutti e quattro i lobi polmonari testati (craniale destro, centro destro, caudale destro e accessorio) nei giorni 2,5 e 8 pi. L'RNA virale è stato ancora rilevato nel lobo polmonare medio destro e nel lobo polmonare accessorio di un animale il giorno 12 pi. L'analisi del titolo virale vivo, rappresentato dai cerchi grigi, ha indicato che il virus infettivo era presente nei turbinati nasali nei giorni 2 (7,5 TCID0/mL(Logl0)) e 5 (6 TCID{{ 11}}/mL(Registro0))pi. Il virus infettivo ha raggiunto il picco nei polmoni il giorno 2, a ~9 TCIDs/mL (Log10) nel polmone medio destro ed era presente fino al giorno 5. La trachea aveva i livelli di virus più bassi di tutti irespiratoriotessuto che era presente solo il giorno 2(~3 TCIDso/mL(Logl0)). vRNA è stato rilevato anche nei tessuti non respiratori, incluso ilcuore, rene, intestino crasso e il linfonodo mediastinico a livelli da bassi a moderati. Il linfonodo mediastinico aveva il livello più alto di vRNA, ~ 5 TCID (Log10), ed era l'unico tessuto non respiratorio positivo al virus infettivo.

Fig 1. L'infezione intranasale da SARS-CoV-2 nei criceti porta a una significativa perdita di peso.I criceti siriani sono stati inoculati per via nasale con il grave acutorespiratoriosindrome coronavirus 2 (SARS-CoV-2) a 105 TCID50. Il peso (A e B) è stato registrato per 15 giorni dopo l'inoculazione. I risultati medi (A) mostrano la media. I risultati individuali rappresentano ogni animale (B). indica un valore p<0.05 determined="" by="" anova="" comparing="" hamsters="" on="" the="" day's="" post-inoculation="" to="" baseline="" (day="" 0).="" error="" bars="" indicate="" +/-="" standard="" error="">

Per determinare se la risoluzione del virus fosse dovuta all'elicitazione di anticorpi neutralizzanti, abbiamo quindi quantificato i titoli anticorpali neutralizzanti nei criceti infetti nel corso del tempo (Eig 3A). Il plasma è stato isolato dal sangue raccolto all'autopsia per essere utilizzato per i test di neutralizzazione a 100 TCID per reazione diSARS-CoV-2. Anticorpi neutralizzanti sono stati rilevati già al giorno 8 pi, a un titolo endpoint di circa 63 (media geometrica). Questo è aumentato a una media geometrica di 160 il giorno 12 e ha raggiunto il picco il giorno 15 a una media geometrica di 587. Queste osservazioni hanno suggerito che i criceti sono in grado di suscitare titoli elevati di anticorpi neutralizzanti dopoSARS-CoV-2infezione. I lavaggi nasali sono stati raccolti durante lo studio per determinare lo spargimento virale dalla tomaiarespiratoriotract.vRNA è stato rilevato nei lavaggi nasali fino a 12 giorni dopo l'inoculazione con virus vivo osservato nei giorni 2 e 5, con un picco al giorno 2 a poco più di 6 TCID5o/mL (Log10). Abbiamo confrontato il titolo virale vivo trovato nei lavaggi nasali di tutti gli animali il giorno 5 con la rispettiva perdita di peso in quel giorno (Fig 3B). Per questa analisi è stata utilizzata una correlazione di Pearson per i dati normalmente distribuiti per determinare se esiste una relazione lineare tra il peso degli animali infetti e il titolo virale nei lavaggi nasali il giorno 5 dopo l'inoculazione con il giorno5 essendo un giorno in cui alcuni animali iniziano a eliminare il virus. Abbiamo trovato una correlazione Pear-figlio di-0.68 tale che con l'aumento del titolo virale nei lavaggi nasali, gli animali avevano una maggiore probabilità di una perdita di peso più grave (valore p =0.00242). Inoltre, abbiamo valutato la relazione tra titolo virale polmonare e perdita di peso il giorno 5 pi. Poiché ogni giorno sono stati raccolti solo 3 animali, i set di dati per valutare una correlazione sono limitati dalla dimensione del nostro campione. Sebbene questo numero di set di dati non soddisfi il numero desiderato di misurazioni, abbiamo eseguito una correlazione di Pearson e abbiamo riscontrato una correlazione negativa, sebbene non significativa, tra il titolo virale polmonare e la perdita di peso il giorno 5 dopo l'inoculazione. Sulla base del titolo virale dei rispettivi lobi polmonari valutato rispetto al peso dell'animale, il polmone cranico destro aveva un valore R di -0.91(valore p=0.27), il polmone medio destro aveva un valore R di-0.92(valore p{33}}.25) e il polmone caudale destro aveva un valore R di -0.58 (valore p{{39 }}.61)(S2 Fig). Dovrebbe essere effettuata una valutazione aggiuntiva su più animali per acquisire fiducia nella relazione traSARS-CoV-2titolo virale polmonare e perdita di peso dell'intero animale.

Fig 2. Il virus SARS-CoV-2 vivo è confinato ai tessuti respiratori e ai linfonodi mediastinici mentre l'RNA virale è presente negli organi extrapolmonari.Gli animali sono stati rimossi dallo studio il giorno 0 prima dell'infezione e i giorni 2, 5 8, 12 e 15 dopo l'inoculazione.respiratorioi tessuti raccolti includevano il turbinato nasale, la trachea e il polmone (lobo cranico destro, lobo medio destro, lobo caudale destro, lobo accessorio). Gli organi extrapolmonari analizzati includevano il linfonodo mediastinico,cuore, rene, fegato milza e intestino crasso. Tutti i tessuti sono stati raccolti per quantificare il virus mediante rilevamento qPCR delSARS-CoV-2Gene E in TCID50/mL equivalenti basato su una curva standard di RNA virale utilizzando RNA estratto da uno stock diSARS-CoV-2con una concentrazione nota (TCID50/mL) (marrone). Il virus infettivo è stato quantificato mediante un test della dose infettiva di coltura tissutale ed espresso in TCID50/mL (grigio). TCID50/mL è stato calcolato utilizzando il metodo Reed e Muench. La linea tratteggiata rappresenta il limite di rilevamento nel test della carica virale in tempo reale, in base alla diluizione più bassa del campione. Il limite di rilevamento per il rilevamento qPCR del gene E era 101 TCID50/mL. I punti dati rappresentano i singoli animali e la linea rappresenta la media.

La polmonite e la patologia polmonare sono spesso la caratteristica distintiva direspiratorioinfezione virale, con conseguente significativa morbilità e mortalità. Per determinare l'entità del danno ai polmoni inSARS-CoV-2criceti infetti e la capacità dei criceti di ricapitolare il graverespiratoriocoinvolgimento in pazienti umani COVID-19, abbiamo esaminato la patogenesi della malattia all'interno del polmone sinistro dei criceti durante il corso dell'infezione (Fig. 4). L'analisi microscopica della colorazione H&E ha indicato un aumento del danno polmonare nel corso dell'infezione, con la patologia più grave rilevata il giorno 8 pi che si è parzialmente risolta entro il giorno 15 (Eig 4A). I criceti non infetti avevano uno spazio alveolare libero senza evidenza di infiltrazione o emorragia di cellule infiammatorie. Entro il giorno 2 pi, l'infiltrazione di cellule mononucleate era presente negli spazi alveolari e peribronchiali (freccia gialla). L'infiltrazione cellulare è proseguita il giorno 5 con una maggiore infiltrazione. Il giorno 8, lo spazio peribronchiale era caratterizzato dalla presenza di cellule mononucleate infiammatorie. È stata notata la desquamazione delle cellule epiteliali nei bronchioli (freccia nera) e si è potuta osservare un'emorragia in tutto il tessuto (freccia rossa). L'emorragia è stata risolta entro il giorno 12 sebbene l'iperplasia fosse evidente (freccia verde). Entro il giorno 15 è stata osservata la formazione della membrana ialina (freccia blu) con concomitante riduzione dell'infiltrazione di cellule infiammatorie.

Fig 3. La diffusione virale di SARS-CoV-2 aumenta con la gravità degli esiti clinici ma diminuisce poiché gli anticorpi neutralizzanti sono rilevabili nel plasma animale.Sono stati raccolti lavaggi nasali per quantificare il virus mediante rilevamento qPCR delSARS-CoV-2gene E (marrone) ed espresso in TCID50/ml equivalenti. Sono stati eseguiti saggi di carica virale in tempo reale (grigio) per quantificare i virus infettivi. I titoli infettivi dei lavaggi nasali sono stati determinati mediante saggi di titolazione della dose infettiva di colture tissutali e il TCID50/mL risultante è stato calcolato utilizzando il metodo Reed e Muench. LOD=limite di rilevamento per i test di carica virale in tempo reale. I titoli di neutralizzazione del virus sono stati determinati mediante saggi di neutralizzazione standard utilizzando plasma raccolto nel corso del tempo (nero) (A). Il titolo virale vivo nei lavaggi nasali è correlato negativamente con la perdita di peso il giorno 5 dopo l'infezione. Valore R=-0.68 (valore p=0.00242) (B).
Per convalidare i risultati della carica virale nel polmone, oltre a visualizzare la posizione del virus, abbiamo eseguito la colorazione IHC del lobo polmonare sinistro per rilevareSARS-CoV-2proteina spike. Nessuna proteina virale è stata rilevata in criceti non infetti suggerendo la specificità dell'anticorpo utilizzato. Il giorno 2 pi, il polmone sinistro presentava una colorazione significativa (freccia nera) che suggeriva un accumulo diSARS-CoV-2antigene spike (Eig 4B). La colorazione era più evidente nelle cellule epiteliali del bronchiolo, con colorazione diffusa in tutte le cellule epiteliali della parete alveolare. Il giorno 5 era presente una leggera colorazione (frecce blu) attraverso le vie aeree e le cellule alveolari. Nessuna colorazione è stata rilevata il giorno 8 pi in cui le immagini apparivano simili alle immagini del bronchiolo non infetto.
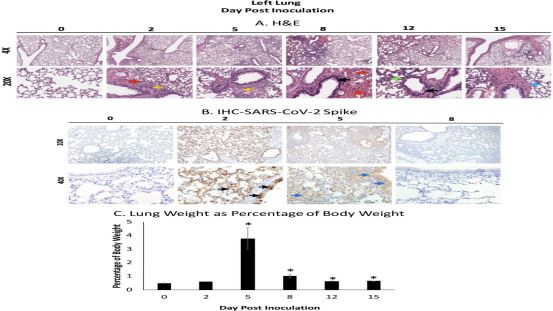
Fig 4. I criceti inoculati presentano un'infiammazione significativa nel polmone in coincidenza con la colorazione dell'antigene Spike SARS-CoV-2.Il polmone sinistro è stato raccolto da ciascun animale durante l'autopsia e perfuso con il 10% di formalina prima dell'inclusione del blocco di paraffina e della colorazione H&E. Le frecce rosse indicano un'emorragia; le frecce verdi indicano l'iperplasia; le frecce gialle indicano l'infiltrazione di cellule mononucleate; le frecce nere rappresentano la desquamazione cellulare; la freccia blu rappresenta la formazione della membrana ialina (A). Il polmone è stato macchiato per la presenza diSARS-CoV-2proteina spike di IHC utilizzando un anticorpo monoclonale di coniglio anti-spike. Le frecce nere indicano quantità elevate di colorazione dell'antigene virale e le frecce blu indicano la presenza di basse quantità di colorazione dell'antigene virale (B). L'intero polmone è stato pesato all'autopsia e la patologia macroscopica polmonare è stata rappresentata come percentuale del peso corporeo totale dell'animale (C). Sono stati analizzati almeno 3 animali per punto temporale. indica un p-value inferiore<0.05 determined="" by="" anova="" comparing="" hamsters="" on="" the="" day's="" post-inoculation="" to="" baseline="" (day="" 0).="" error="" bars="" indicate="" +/-="" se.="" slides="" were="" visualized="" and="" imaged="" using="" the="" leica="" dmi100="" brightfield="" microscope="" and="" dmc5400="" 20="" mp="" color="" cmos="" camera.="" images="" were="" captured="" and="" 10x="" and="" 40x.="" the="" images="" shown="" are="" representative="" of="" 3="" animals="" per="" group,="" per="" time="">
Per quantificare l'infiammazione e l'infiltrazione di cellule infiammatorie, nonché l'edema nel polmone, sono stati analizzati i pesi dei polmoni all'autopsia. L'intero polmone è stato pesato all'autopsia ed è stato calcolato un rapporto con il peso corporeo dell'animale e quindi espresso come percentuale (Fig. 4C). Nei giorni 0 e 2 pi, il polmone era inferiore all'uno per cento del peso corporeo del criceto . Questo è aumentato a un picco significativo il giorno 5 a poco meno del 4% del peso corporeo in media. Il peso polmonare è diminuito all'1% ed è rimasto statisticamente significativo rispetto al basale per tutto il tempo rimanente.
L'espressione del gene ospite e il profilo immunopatologico indicano una risposta infiammatoria pronunciata con segnalazione di interferone di tipo I smussato nelrespiratoriotratto
Poiché i dati sull'uomo hanno studiato i livelli di citochine sistemiche nel sangue, eravamo interessati a determinare le risposte immunitarie nel sito dell'infezione e in altri organi colpiti. Abbiamo studiato i livelli di risposta all'interferone di tipo I correlati (IFN(Interferone)-beta, STAT(segnale trasduttore e attivatore della trascrizione)2, IRF (fattore di regolazione dell'interferone)1, IRF3 e TLR (recettore Toll-like)3) ,correlato alla risposta dell'interferone di tipo II (IFN-gamma,IRF2, STAT1, CXCL10) e marcatori e mediatori innati/adattativi (CD3, CD4, CD8A, CD19,IL-2, TGF (fattore di crescita trasformante)-beta ,IL-21,IL-10,IL-4,IL-5,IL-5R,IL-13,IL-12 ,CD14,PKR, CCR3, CCL20, CCL22,IL-1beta, IL-6, TNF).
Rapporti clinici umani lo hanno indicatoSARS-CoV-2l'infezione porta a una disregolazione della risposta all'interferone[14]. Abbiamo studiato le risposte IFN di tipo I e I valutando l'espressione di IFN-beta, STAT2, IRF1, IRF3 e TLR3 per la risposta di tipo I e IFN-gamma, IRF2, STAT1 e CXCL10 per la risposta di tipo II (Fig5) . L'IFN-beta era significativamente sottoregolato sia nei turbinati nasali che nel polmone cranico destro con la massima inibizione il giorno 2. Anche i regolatori a valle della risposta dell'IFN di tipo I erano diminuiti, inclusi STAT2 e IRF1 che hanno raggiunto la massima inibizione nel corso del tempo, poiché così come IRF3 e TLR3 che non hanno mostrato alcun aumento dell'espressione genica. Abbiamo anche esaminato la risposta dell'IFN di tipo II, nonché i geni le cui proteine corrispondenti agiscono in entrambi i percorsi dell'IFN. L'IFN-gamma, l'IFN di tipo II, ha mostrato una sovraregolazione nei turbinati nasali e soprattutto nel polmone (Fig. 5). In entrambi i tessuti si è verificato un aumento fino a un picco seguito da una risoluzione entro il giorno 15 pi. I livelli dei turbinati nasali di IFN-gamma hanno raggiunto il picco il giorno 8 con una variazione di piega di 12, mentre i livelli nel polmone hanno raggiunto il picco il giorno 5 con una variazione di piega di 17.respiratoriotessuti, l'antagonista dell'IFN di tipo I IRF2 ha mostrato aumenti significativi, con un picco il giorno 8 nel turbinato nasale e il giorno 2 nel polmone cranico destro, con variazioni di piega rispettivamente di 24 e 25. Anche le molecole di risposta dell'IFN generale hanno mostrato aumenti significativi. STAT1 ha mostrato una forte sovraregolazione in entrambi i tessuti nei giorni 2 e 5, mentre CXCL10 ha raggiunto il picco al giorno 2 nei turbinati nasali con un cambio di piega vicino a 70. Nel polmone, CXCL10 ha raggiunto il picco su giorno 8 con un cambio di piega di 30 ma non si è risolto di nuovo al basale ed è rimasto significativamente aumentato rispetto agli animali naïve nei giorni 12 e 15 pi. Da questi dati, sembra che mentre la risposta IFN di tipo II rimane intatta, i criceti sono stati inoculatiSARS-CoV-2mostrano una risposta disregolata di tipo IIFN inrespiratoriotessuti.
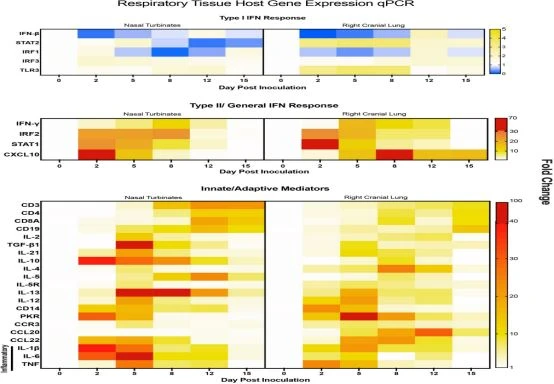
Fig 5. L'analisi dell'espressione genica nei tessuti respiratori dei criceti infetti da SARS-Cov-2 rivela una significativa disregolazione dell'interferone con aumenti concomitanti dei mediatori infiammatori e immunitari.La qRT-PCR è stata eseguita su RNA estratto dal turbinato nasale e dal tessuto polmonare cranico destro diSARS-CoV-2criceti inoculati. I campioni sono stati valutati per la risposta all'interferone di tipo I correlata (IFN-beta, STAT2, IRF1, IRF3, TLR3), alla risposta all'interferone di tipo II (IFN-gamma, IRF2, STAT1, CXCL10) e innata/ mediatori adattativi (CD3, CD4, CD8, CD19, IL-2, TGF-beta, IL-21, IL- 10, IL-4, IL-5, IL-5R, IL-13, IL-12, CD14, CCR3, PKR, CCL20, CCL22, IL-1beta, IL-6, TNF) utilizzando primer specifici per i geni del criceto (Tabella 1). Il cambiamento di piega è stato calcolato tramite ΔΔCt rispetto al basale (giorno 0) con BACT come gene housekeeping. Almeno tre animali sono stati analizzati per ogni punto temporale.
Inoltre, abbiamo anche valutato la regolazione genica innata e adattativa. Nel complesso, questi geni erano sovraregolati sia nei turbinati nasali che nel polmone cranico destro, con i turbinati nasali che mostravano tipicamente un'espressione più elevata (Fig. 5). I turbinati nasali avevano un'espressione genica di picco di IL-2, TGF-beta, IL-21, IL-4, IL-5R, IL-13 e CCR3 il giorno 5 pi, con l'espressione più alta proveniente da TGF-betal con un cambio di piega di 97 e l'espressione IL-13 a 45.IL{14}} ha raggiunto il picco il giorno2 con un cambio di piega di 38 ma è rimasto sovraregolato per tutto il corso del tempo, in modo significativo nei giorni 5 e 10. L'espressione di IL-5 ha raggiunto il picco il giorno 12 con un cambio di piega di 21. All'interno del polmone, l'espressione più alta per gene variava: TGF-betal, IL{ {25}} e IL-13 hanno mostrato la sovraregolazione più alta il giorno 5; IL-10, IL-4 e IL{30}} il giorno 8; e IL-2 il giorno 12.IL-4 e IL-13 hanno mostrato la maggiore sovraregolazione, a 25 e 18 nei rispettivi giorni di picco. I marcatori specifici delle cellule T erano più alti nei turbinati nasali, con il picco di espressione genica il giorno 12 e rimanendo alto il giorno 15. Ciò suggerisce una risposta delle cellule T coinvolte che è stata ulteriormente supportata dalla sovraregolazione delle citochine Th2 (IL-4 , IL-5 e IL-13), le citochine (mostrate in precedenza IL-12 e IFN-gamma), nonché le citochine T regolatorie e Th17 (IL-10 e TGF-betale), indicando una risposta globale dei linfociti T aSARS-CoV-2infezione. Pertanto, abbiamo eseguito IHC per determinare la presenza di cellule CD3 plus e CD20 plus all'interno delrespiratoriotratto (S3 Fig). La colorazione CD3 plus è stata concentrata sui vasi sanguigni (frecce rosse) nel tessuto polmonare non infetto senza alcuna colorazione all'interno degli spazi alveolari. La presenza di cellule CD3 plus (figura S3A, frecce nere) è aumentata nello spazio alveolare nel corso del tempo raggiungendo la colorazione massima il giorno 8 dopo l'inoculazione e quindi diminuendo di intensità oggi 15. La colorazione CD20 non è stata rilevata nel tessuto non infetto. Un piccolo numero di cellule CD20 plus è stato rilevato nei giorni 2,5 e 8 dopo l'inoculazione (figura S3B, indicata da frecce nere) che è diminuito nei giorni 12 e 15 come indicato dalle frecce grigie.
L'analisi dei marcatori infiammatori all'interno dei turbinati nasali ha indicato aumenti transitori significativi di tutti i target infiammatori che si sono risolti entro i giorni 12 e 15.IL-1beta ha raggiunto livelli massimi il giorno 2 pi con un cambio di piega di 4{{7 }} parenti oggi 0animali non infetti (Fig. 5).IL-6, IL-12 e TNF hanno raggiunto l'apice del giorno 5 pi (cambiamenti di piega rispettivamente di 66,20 e 26). Il significato corrispondente può essere trovato nella tabella S1. Al contrario, queste trascrizioni hanno raggiunto l'apice tra i giorni 2 e 5, ma con un cambiamento di piega inferiore rispetto al polmone. Sia nei turbinati nasali che nel polmone, diverse citochine infiammatorie sono rimaste elevate rispetto al basale fino al giorno 12 pi. Nel loro insieme, i siti di infezione hanno mostrato un chiaro aumento dei marcatori infiammatori, in particolare IL-6 nei turbinati nasali e il TNF nel polmone.


