Modellazione dell'influenza dell'immunità acquisita naturalmente dall'infezione subclinica sulla dinamica dell'epidemia e sulla persistenza della rabbia nei cani domestici Parte 1
Apr 20, 2023
Astratto
Diversi modelli matematici sono stati sviluppati per la rabbia canina per esplorare le dinamiche e informare le strategie di controllo. Un presupposto comune di questi modelli è che l'immunità acquisita naturalmente non gioca alcun ruolo nelle dinamiche della rabbia. Tuttavia, studi empirici hanno rilevato anticorpi specifici per la rabbia in cani domestici sani e non vaccinati, potenzialmente a causa di un'esposizione immunizzante non letale. Abbiamo sviluppato un modello stocastico per la rabbia canina, parametrizzato per la contea di Laikipia, in Kenya, per esplorare le implicazioni di diversi scenari per l'immunità acquisita naturalmente alla rabbia nei cani domestici. La simulazione di questi scenari utilizzando un modello non spaziale ha indicato che bassi livelli di immunità possono agire per limitare l'incidenza della rabbia e prevenire l'esaurimento della popolazione canina domestica, aumentando la probabilità di persistenza della malattia.
Tuttavia, l'incorporazione della struttura spaziale e della risposta umana all'elevata incidenza di rabbia ha permesso al virus di persistere in assenza di immunità. Mentre bassi livelli di immunità, quindi, avevano un'influenza limitata sotto un'approssimazione più realistica delle dinamiche della rabbia, erano necessari alti tassi di esposizione che portassero a un'esposizione immunizzante non letale per produrre sieroprevalenze a livello di popolazione paragonabili a quelle riportate negli studi empirici. I falsi positivi e/o la variazione spaziale possono contribuire a sieroprevalenze empiriche elevate. Tuttavia, se le alte sieroprevalenze sono correlate a tassi di esposizione elevati, questi risultati supportano la necessità di un'elevata copertura vaccinale per controllare efficacemente questa malattia.
L'alta vaccinazione può migliorare l'immunità del corpo. La vaccinazione consiste nell'indurre il sistema immunitario umano a generare una risposta immunitaria contro questi agenti patogeni iniettando vaccini contenenti antigeni patogeni o parti di agenti patogeni replicati dai virus. Questa risposta immunitaria contro gli agenti patogeni protegge il corpo da malattie specifiche e aumenta l'immunità del corpo. L'immunità umana è anche molto importante nella vita quotidiana. Si trova nei registri che Cistanche può essere utilizzato come integratore alimentare per la nostra immunità quotidiana. I polisaccaridi in Cistanche possono regolare la risposta immunitaria del sistema immunitario umano e migliorare la capacità di stress delle cellule immunitarie, potenziando l'effetto battericida delle cellule immunitarie.

Clicca quando prendere la cistanche
Sommario dell'autore
Anticorpi specifici per la rabbia nei cani domestici non vaccinati sono stati riportati in diversi studi, in alcuni casi in una parte sostanziale della popolazione. Questi anticorpi possono essere il risultato di un'esposizione non letale alla rabbia che porta a un'immunità acquisita naturalmente, che potrebbe influenzare la trasmissione e la persistenza della rabbia.
In questo studio, è stato sviluppato un modello per considerare una serie di scenari per l'immunità acquisita naturalmente in una popolazione di cani domestici. I risultati del modello per l'incidenza e la sieroprevalenza della rabbia, la proporzione della popolazione con anticorpi contro la rabbia, sono stati confrontati con le stime di studi empirici. I nostri risultati indicano che l'immunità acquisita naturalmente potrebbe contribuire alla persistenza della rabbia limitando l'incidenza della malattia e prevenendo l'estinzione della popolazione.
Tuttavia, tenendo conto della struttura spaziale e della risposta umana all'elevata incidenza della rabbia, è emerso che la rabbia potrebbe persistere senza un'immunità acquisita naturalmente, sebbene l'immunità possa contribuire alla bassa incidenza osservata per la rabbia endemica. L'ipotesi di tassi più elevati di esposizione subclinica ha portato a sieroprevalenze paragonabili alle stime degli studi empirici. Tuttavia, rimane l'incertezza sull'interpretazione degli anticorpi antirabbici negli individui non vaccinati e i falsi positivi possono contribuire all'elevata sieroprevalenza riportata.
introduzione
La rabbia è una malattia zoonotica, causata da un virus neurotropico della famiglia dei lyssavirus. Nonostante l'eradicazione sia stata raggiunta in alcune parti del mondo, la malattia rappresenta ancora un onere significativo per la salute pubblica, in particolare nell'Africa rurale e in Asia [1]. Tutte le specie di mammiferi sono suscettibili alla rabbia, tuttavia solo un numero limitato, principalmente pipistrelli e carnivori, può mantenere il virus all'interno delle proprie popolazioni [2]. In Africa, i cani domestici sono l'ospite principale della rabbia e causano la maggior parte dei casi umani, quindi il controllo della malattia in questa specie è fondamentale per prevenire la morte per rabbia umana [3].
Diversi modelli sono stati costruiti per le dinamiche della rabbia nelle popolazioni di cani domestici [4,5]. Un presupposto comunemente usato in questi modelli è che l'immunità si verifica solo attraverso la vaccinazione e non come risultato di un'esposizione non letale (ad esempio [4-7], ma vedi [8]).
Mentre la rabbia è solitamente fatale dopo la comparsa dei sintomi, Hampson et al. (2009) hanno stimato che il 51% delle esposizioni al morso nei cani domestici non ha portato a un'infezione clinica [9]. Di questi episodi di esposizione, non è chiaro se il virus non riesce sempre a stabilirsi e l'ospite rimane suscettibile, o se in alcuni casi il virus viene eliminato dal sistema immunitario dell'ospite, con conseguente sviluppo di un'immunità protettiva. Sebbene il recupero dalla rabbia clinica sia raro, studi sperimentali hanno dimostrato che può verificarsi un'esposizione non letale alla rabbia, con individui esposti che non mostrano sintomi o solo lievi [10,11]. In condizioni di campo, c'è stata poca considerazione della sieroconversione, lo sviluppo di una specifica risposta anticorpale, a seguito dell'esposizione alla rabbia.
Tuttavia, Cleaveland e Dye (1995) hanno riferito che su 17 cani morsi da due sospetti individui rabbiosi, 12 sono sopravvissuti all'esposizione, di cui quattro sono stati poi sieroconvertiti. Oltre all'esposizione subclinica al morso, vi sono anche prove limitate che l'esposizione orale, ad esempio dall'alimentazione di carcasse infette, possa portare allo sviluppo di anticorpi specifici per la rabbia nei carnivori [12,13]. La possibilità che l'esposizione orale porti allo sviluppo dell'immunità alla rabbia è supportata anche dal successo delle campagne di vaccinazione che utilizzano vaccini orali [14,15].
Anticorpi specifici per la rabbia sono stati rilevati in individui sani e non vaccinati in diverse popolazioni di cani domestici in aree endemiche per la rabbia, con un'ampia gamma di sieroprevalenze (la percentuale della popolazione con anticorpi specifici per la rabbia rilevabili) riportata [16]. Esistono diverse sfide nell'interpretazione della sierologia, incluso il fatto che diversi studi hanno utilizzato test e cut-off diversi per definire la sieropositività [16,17].
Tuttavia, dato che la rabbia clinica si verifica tipicamente a bassa prevalenza, colpendo circa l'1% dei cani all'anno all'interno delle popolazioni in cui la rabbia è endemica [6,18-20], le alte sieroprevalenze rilevate in alcuni studi (ad es. 7,4% [ 21]; 28,0% [22]; 28,8% [23]; 30% [24]) potrebbe suggerire alti tassi di esposizione non letale rispetto al tasso di esposizione che porta a infezione clinica. Mentre in alcuni casi gli animali senza storia di esposizione alla rabbia possono risultare positivi a causa di neutralizzazione non specifica o reattività crociata, queste alte stime di sieroprevalenza aumentano la possibilità che l'immunità acquisita naturalmente possa svolgere un ruolo più significativo nelle dinamiche della rabbia di quanto precedentemente considerato. 16].
A causa della bassa incidenza della rabbia nelle popolazioni di cani domestici, la rabbia raramente porta a un sostanziale impoverimento della popolazione [19,25,26]. Tuttavia, ci sono prove che la trasmissione della rabbia dipende dalla frequenza, con tassi di trasmissione che rimangono relativamente costanti in un'ampia gamma di densità di cani domestici [18,27]. I modelli suggeriscono che questa forma di trasmissione dovrebbe portare a focolai ad alta prevalenza e sostanziali perdite di popolazione [18]. I meccanismi che potrebbero limitare l'incidenza della rabbia in condizioni di vita reale includono la struttura spaziale (che potrebbe portare all'esaurimento locale del pool suscettibile senza una trasmissione diffusa) e l'intervento umano, come l'uccisione e l'isolamento di cani infetti, a seguito di un aumento dell'incidenza [5,9 ,18,28].
L'immunità naturalmente acquisita potrebbe potenzialmente anche contribuire alla persistenza di basso livello della rabbia proteggendo una parte della popolazione, che può quindi produrre nuovi ospiti suscettibili. L'immunità acquisita naturalmente è stata considerata un meccanismo per la persistenza della rabbia nei pipistrelli vampiri [29], ma di solito non è considerata nei modelli di cani domestici [es. 5,7,30].
In questo studio, esploriamo le implicazioni dell'immunità acquisita naturalmente al virus della rabbia, derivante dall'esposizione subclinica, per la dinamica della rabbia nei cani domestici utilizzando un modello stocastico parametrizzato per la contea di Laikipia, in Kenya. La rabbia è endemica a Laikipia e una sieroprevalenza del 28% è stata precedentemente riportata nella popolazione di cani domestici [22]. Inizialmente viene utilizzato un modello non spaziale per esplorare un'ampia gamma di valori dei parametri per l'immunità acquisita naturalmente nei cani domestici. Questo modello viene quindi esteso in un modello spaziale per considerare un sottoinsieme di potenziali scenari di immunità. Sebbene il modello spaziale si basi su un numero maggiore di presupposti, consente di considerare le implicazioni dell'immunità con un'approssimazione più realistica delle dinamiche della rabbia.

Metodi
Un modello stocastico di rabbia è stato sviluppato e parametrizzato per la popolazione di cani domestici nella contea di Laikipia, in Kenya. È stata utilizzata una struttura a compartimenti con cani suddivisi in individui suscettibili (S) che possono contrarre il virus, individui esposti (E) che stanno incubando il virus, individui infettivi (I) che possono trasmettere il virus e individui con immunità acquisita naturalmente (R ) che sono immuni alla reinfezione e si presume abbiano anticorpi antirabbici rilevabili. È stata simulata una popolazione totale di 63.434 cani e si è ipotizzato che tutti gli individui della popolazione non fossero vaccinati. I metodi per stimare il numero di cani domestici e simulare la demografia del cane sono presentati nel testo S1.
Dinamiche di trasmissione
Per la rabbia, la maggior parte della trasmissione avviene attraverso l'esposizione al morso [31]. Tuttavia, altre vie di trasmissione, come l'esposizione orale, possono essere rilevanti quando si considera l'infezione subclinica [13,32,33]. L'esposizione è stata quindi definita come qualsiasi interazione tra individui che potrebbe provocare un trasferimento virale. Il tasso di esposizione è stato assunto come dipendente dalla frequenza, sulla base di diversi studi che hanno indicato che R0 (il numero di riproduzione di base: il numero medio di casi secondari prodotti da un caso in una popolazione completamente suscettibile) per la rabbia è relativamente coerente per le popolazioni di cani domestici in una gamma di densità di popolazione [27,34,35].
L'esplorazione iniziale del modello è stata condotta utilizzando un valore R{{0}} di 1,2, che è compreso nell'intervallo da uno a due tipicamente riportato per la rabbia del cane domestico [9,35]. Anche l'influenza di valori R0 più elevati all'interno di questo intervallo è stata considerata utilizzando il modello spaziale. La seguente equazione per R0 è stata riorganizzata per calcolare il tasso di esposizione infettiva ( ), il numero di individui esposti al giorno da un individuo infetto:

Il prodotto del tasso di esposizione ( ) e la probabilità di sviluppare un'infezione clinica in seguito all'esposizione (ϕ) cattura il tasso di trasmissione. Il numero di riproduzione di base, R0, si trova moltiplicando questa quantità per la durata media del periodo infettivo (1/ν).
Modellazione dell'immunità acquisita naturalmente
A seguito dell'esposizione di un individuo suscettibile, abbiamo ipotizzato che ci fossero tre possibilità. A seconda della probabilità di sviluppare un'infezione clinica (ϕ), una proporzione di individui entra nel compartimento esposto, dal quale progredisce fino a diventare clinicamente infettiva a una velocità σ al giorno. Una volta infetti, i cani soccombono alla rabbia in media dopo 3,1 giorni (ν-1) [9]. La percentuale rimanente (1-ϕ) è esposta in modo subclinico e diventa immune sviluppando una risposta anticorpale (ρ) ed entra nel compartimento R o rimane suscettibile (1- ρ). Questa struttura del modello presuppone che i cani non possano sviluppare la rabbia sintomatica e poi riprendersi e che gli individui esposti subclinicamente non trasmettano la malattia.
In questo modello, si presumeva che tutti gli individui nel compartimento immunitario (R) avessero anticorpi antirabbici rilevabili che conferiscono immunità protettiva. Pertanto, la proporzione di individui nel compartimento R è stata considerata uguale alla sieroprevalenza prevista. Abbiamo ipotizzato che la dinamica degli anticorpi sviluppati attraverso l'esposizione naturale sarebbe paragonabile a quella dell'immunità derivata dal vaccino.
Sulla base della velocità con cui i titoli anticorpali diventano non rilevabili in condizioni di campo dopo la vaccinazione, per l'esplorazione iniziale del modello si è ipotizzato che gli individui sarebbero rimasti nel compartimento R in media per un anno (δ-1) [36-38]. Tuttavia, gli esperimenti di provocazione hanno dimostrato che l'immunità alla rabbia può persistere per periodi più lunghi e che i cani possono rimanere protetti anche quando i pneumatici anticorpali sono scesi al di sotto dei livelli rilevabili [39-41], pertanto è stata esplorata anche l'influenza di un lungo periodo di persistenza di tre anni utilizzando il modello spaziale
Le seguenti equazioni descrivono l'intero modello non spaziale:
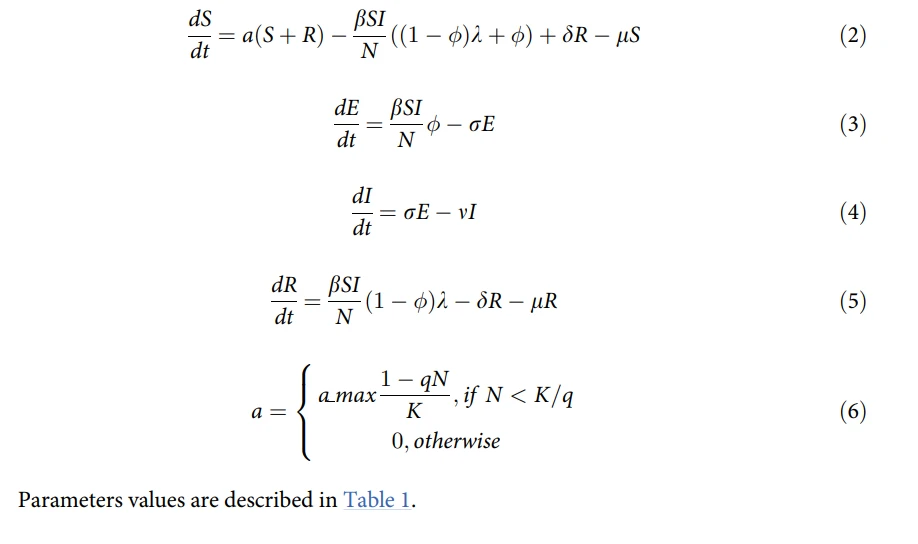
I valori dei parametri sono descritti nella Tabella 1.

Incorporando la struttura spaziale e l'intervento umano
Sebbene il modello non spaziale consenta l'esplorazione delle dinamiche della rabbia riducendo al minimo il numero di ipotesi fatte, non riesce a catturare gli aspetti chiave delle dinamiche della rabbia. Precedenti studi sullo sviluppo di modelli epidemiologici della rabbia hanno mostrato l'importanza delle dinamiche della rabbia della struttura spaziale, del movimento dei cani mediato dall'uomo e dell'intervento umano nel caso di un'elevata incidenza di rabbia [18,43-45]. Per considerare le implicazioni dell'immunità acquisita naturalmente in uno scenario più realistico, il modello non spaziale è stato esteso per incorporare l'eterogeneità spaziale e l'intervento umano.
Una struttura patch è stata utilizzata come una forma di modello di metapopolazione in cui le sottopopolazioni rappresentano appezzamenti di terreno adiacenti. In totale sono state incluse 154 patch, che rappresentano una gamma di usi del suolo, come singoli ranch, villaggi e comunità che hanno comunità umane distinte e quindi dovrebbero avere popolazioni di cani domestici discrete (Fig. 1).
Si presumeva che i cani infettivi rimanessero all'interno della loro zona, ma potessero trasmettersi a individui suscettibili in altre zone. Si presumeva quindi che la forza dell'infezione all'interno del cerotto I dipendesse dal numero di individui infetti, moltiplicato per la probabilità di contatto con i cerotti in cui si trovavano quegli individui infetti. I dettagli per il calcolo delle probabilità di contatto sono forniti nel testo S1.
Mentre si presumeva che i cani infettivi rimanessero nel loro cerotto, il movimento dei cani suscettibili (S), esposti (E) e immuni (R) tra i cerotti mediante il movimento mediato dall'uomo è stato simulato utilizzando un modello di gravità (Vedi testo S1 per i dettagli) . È stato suggerito che l'intervento umano in risposta all'elevata incidenza di rabbia attraverso interventi come legare o uccidere cani rabbiosi sia un fattore importante nel limitare l'incidenza della rabbia [9,18]. Questa risposta è stata incorporata nel modello attraverso un aumento dipendente dall'incidenza del tasso di mortalità dei cani infetti, che si presume agisca a livello locale all'interno delle patch.
All'interno di ciascun cerotto, si presumeva che se più dell'1% della capacità di carico del cerotto fosse morto di rabbia nel mese precedente, l'aumento dell'intervento umano avrebbe causato un aumento del tasso di mortalità degli individui infetti. Ulteriori dettagli sulla parametrizzazione di questa risposta sono forniti nel testo S1 e i risultati sono presentati da simulazioni su una gamma di livelli di intervento per mostrare l'influenza sugli output del modello in S1 Fig.

Scenari di immunità
I parametri di interesse chiave per il modello sono la proporzione di esposizioni che portano all'infezione clinica (ϕ) e, di esposizioni subcliniche ({{0}}}ϕ), la proporzione che sviluppa l'immunità (ρ). Delle esposizioni al morso, Hampson et al. (2009) hanno stimato che 0,49 portassero a un'infezione clinica. Tuttavia, altre vie di esposizione, come l'alimentazione di carcasse infette o il trasferimento di saliva durante il contatto sociale, possono avere meno probabilità di portare a infezioni cliniche rispetto all'esposizione al morso [31,33]. Rispetto a considerare solo le esposizioni al morso, l'incorporazione di altre forme di esposizione potrebbe quindi portare a un tasso di esposizione più elevato ( ) ma a una minore probabilità di sviluppare un'infezione clinica (ϕ).
Utilizzando il modello non spaziale, per esplorare le implicazioni delle diverse probabilità di esposizione non letale alla rabbia, abbiamo variato ϕ a cinque livelli tra 0.05 (pochissime esposizioni portano a infezione clinica) e {{ 5}}.95 (quasi tutte le esposizioni portano a infezione clinica) ma ha fissato R0 a 1.2. Di conseguenza, quando ϕ era più alto, il tasso di esposizione ( ) veniva abbassato secondo la relazione R0=ϕ/ν, per produrre lo stesso numero di infezioni cliniche secondarie. Questa relazione ha fornito un intervallo di 0,37–7,06 esposizioni per individuo infetto al giorno per un R0 di 1,2. Per ogni livello di ϕ, abbiamo eseguito il modello su cinque livelli di ρ, la probabilità di sviluppare l'immunità, da 0 (nessuna esposizione subclinica porta all'immunità) a 1 (tutte le esposizioni subcliniche portano all'immunità) per ottenere 25 combinazioni di parametri in totale. Inoltre, nel testo S2 viene presentata un'analisi di sensitività del modello non spaziale.
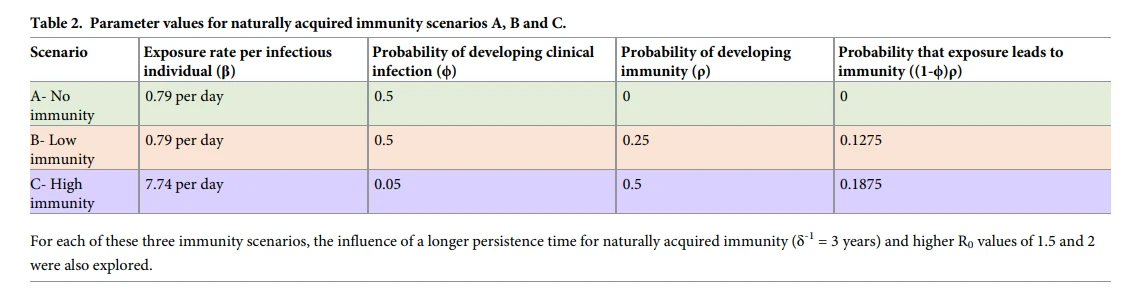
Dopo l'esplorazione dell'intera gamma di valori dei parametri, sono state considerate in dettaglio le combinazioni di tre parametri, che rappresentano tre potenziali scenari (Tabella 1). Il primo scenario (A) presupponeva l'assenza di sviluppo dell'immunità acquisita naturalmente. In questo scenario, si presumeva che la trasmissione avvenisse solo attraverso l'esposizione al morso e che il 50 percento dei morsi portasse a un'infezione clinica (basato su una stima di 0,49 da Hampson et al. (2009), ϕ=0. 5) con quegli individui che non sviluppano un'infezione clinica che rimangono suscettibili (ρ=0). Il secondo scenario (B) presupponeva che l'immunità potesse essere acquisita a seguito di un'esposizione non letale al morso.
La probabilità di infezione clinica era uguale al primo scenario (ϕ=0.5) ma delle esposizioni al morso che non portavano a infezione clinica, si presumeva che il 25% sviluppasse immunità (ρ=0.25 ). Il terzo scenario (C) rappresenta lo scenario meno conservativo per l'immunità acquisita naturalmente. Si presumeva che, oltre all'esposizione al morso, si verificassero anche altre forme di esposizione, come l'esposizione orale attraverso il contatto sociale, che aumentava il tasso di esposizione, ma una percentuale inferiore di esposizioni sviluppava un'infezione clinica (ϕ=0 .05 e=7.7). Delle esposizioni subcliniche, abbiamo ipotizzato che il 50% sviluppasse immunità (ρ=0.5).

Modello in esecuzione e output estratti
Il modello è stato implementato utilizzando il pacchetto SimInf in R [48]. Le dinamiche di infezione sono state implementate come catene di Markov a tempo continuo utilizzando l'algoritmo stocastico di Gillespie. Il modello è stato eseguito con una fase temporale giornaliera con uscite estratte a intervalli settimanali. Per ogni simulazione del modello spaziale, il modello è stato avviato con una prevalenza del 0,5% (24 cani) nella zona con la dimensione della popolazione più grande. Nel modello non spaziale sono stati introdotti anche 24 individui. Per ogni combinazione di parametri, sono state eseguite 1000 simulazioni per 30 anni.
La probabilità di persistenza della rabbia è stata misurata come percentuale di simulazioni in cui gli individui infettivi sono rimasti presenti nella popolazione a 30 anni dall'introduzione. Per le simulazioni in cui la rabbia è rimasta presente, sono state estratte l'incidenza annuale per 100,000 cani per l'ultimo anno e la proporzione immunitaria nell'intervallo temporale finale in tutta la popolazione. Inoltre, per considerare la variazione spaziale nella sieroprevalenza prevista tra i cerotti nel modello spaziale, è stato simulato il campionamento sierologico all'interno dei cerotti. Per ogni simulazione è stata selezionata casualmente una patch ed è stato simulato un campione di 30 individui. La proporzione di questi individui nel compartimento R è stata presa come sieroprevalenza prevista all'interno del cerotto.

Stime empiriche per l'incidenza della rabbia, il declino della popolazione e la sieroprevalenza
Per considerare la plausibilità di diverse combinazioni di parametri per l'esposizione non letale e l'immunità acquisita naturalmente, abbiamo confrontato i risultati del modello per l'incidenza della rabbia, il declino della popolazione e la sieroprevalenza prevista con le stime empiriche estratte dalla letteratura. Per la contea di Laikipia, attualmente non esiste una stima dell'incidenza annuale della rabbia nella popolazione canina domestica. Pertanto, in assenza di dati specifici per posizione, abbiamo estratto intervalli plausibili da altre popolazioni di cani domestici liberi (vedi Tabella 2). Abbiamo estratto questi dati da studi che conducono la sorveglianza attiva, poiché è probabile che la sorveglianza passiva sottostimi significativamente l'incidenza [26]. Sulla base di questi studi, abbiamo ipotizzato un limite massimo per l'incidenza annuale della rabbia di 1.500/100,000 (Tabella 2).
A causa della bassa incidenza della rabbia, non si prevede che un sostanziale declino della popolazione derivi dalla rabbia endemica, sebbene le dimensioni delle popolazioni possano variare. Ad esempio, nelle popolazioni di cani con rabbia endemica in Indonesia e Sud Africa, Morters et al. (2014) riportano una variazione della dimensione della popolazione fino al 22% rispetto alla media durante il periodo di studio. In Sud Africa, Conan et al. (2015) riportano cambiamenti annuali nella dimensione della popolazione da più 18,6% a -24,5% . In questo studio, abbiamo ipotizzato che una volta endemica, presa 30 anni dopo l'introduzione, la rabbia non avrebbe causato un calo della popolazione superiore al 20% rispetto alla capacità di carico.
Abbiamo anche considerato la sieroprevalenza prevista dal modello rispetto alle stime empiriche. In Laikipia, Prager et al. (2012) hanno riportato una sieroprevalenza del 28% in 75 cani domestici testati utilizzando un test rapido di inibizione della messa a fuoco fluorescente (RFFIT; 95% CI: 18,2-39,6%). Tuttavia, questo studio ha utilizzato un cut-off basso di 0.05 UI/ml che aumenta la probabilità di falsi positivi. Ci sono anche prove che i saggi di immunoassorbimento enzimatico (ELISA) sono più specifici per rilevare l'esposizione non letale rispetto ai test di neutralizzazione [21]. Anche gli studi che utilizzano ELISA hanno rilevato un'elevata sieroprevalenza. Laurenson et al. (1997) hanno riscontrato una sieroprevalenza del 30,0% in Namibia [24], Bahloul et al. (2005) del 28,8% in Tunisia [23], e Cleaveland et al. (1999) del 7,4% in Tanzania [21]. Pertanto, abbiamo considerato un intervallo compreso tra il 7 e il 30% per la sieroprevalenza nei cani domestici [16].
Risultati
Modello non spaziale
Assuming an R0 of 1.2, with no spatial structure and no incidence-dependent human response, rabies was not predicted to persist in the absence of any naturally acquired immunity (ρ = 0) or with a low probability of sub-clinical exposure (ϕ = 0.95) (Fig 2A). Allowing a proportion of dogs to develop immunity (ρ>{{0}}) ha aumentato la probabilità di persistenza della rabbia, con le più alte probabilità di persistenza a probabilità intermedie di immunità acquisita. Ad esempio, supponendo che il 50 percento delle esposizioni abbia portato a un'infezione clinica, con il 25 percento degli individui esposti subclinicamente che sviluppano l'immunità (Scenario B- ϕ=0.5, ρ=0.25 ), la rabbia è rimasta endemica nel 94% delle simulazioni. L'incidenza annua mediana in questo scenario era alta a 61.820/100,000 (intervallo interquartile (IQR): 19.139/100,000), con un forte calo della popolazione rispetto alla capacità di carico (mediana: 96,0 percento, IQR: 2,0 percento). Assumere maggiori probabilità di immunità acquisita ha portato a una minore persistenza, a causa della ridotta incidenza e di una maggiore probabilità di estinzione stocastica.
Ad esempio, nello scenario C, con una bassa probabilità che un individuo sviluppi un'infezione clinica (ϕ=0.05) e un'alta probabilità di sviluppare l'immunità (ρ = 0.5), l'incidenza è stata ridotta a 2.207/100,000 (IQR: 1181) con rabbia persistente nell'87% delle simulazioni. Nessuna combinazione di parametri nel modello omogeneo ha portato a risultati mediani sia per l'incidenza che per il declino della popolazione nell'intervallo considerato plausibile (Tabella 3). Tuttavia, delle combinazioni di parametri in cui si prevedeva che la rabbia persistesse nella maggior parte delle simulazioni, lo Scenario C (lo scenario ad alta immunità, Tabella 2) aveva un'incidenza più vicina all'intervallo plausibile e un basso declino della popolazione mediana del 3,6% (IQR: 1,1 per cento) (Fig. 2).
Dell'insieme completo di 25 combinazioni di parametri considerate, la combinazione che ha generato la più alta sieroprevalenza mediana prevista, del 16,0 percento (IQR: 3,5 percento), era una probabilità che un individuo sviluppasse un'infezione clinica (ϕ) di { {5}}.05 e una probabilità di sviluppare l'immunità (ρ) di 0.25. Questa sieroprevalenza prevista è vicina alla soglia per l'immunità di gregge per un R0 di 1,2 (1-1/R0=0.167). A questa soglia ogni individuo infettivo si infetta in media l'un l'altro, portando a un'infezione endemica stabile. Per il sottoinsieme dei tre scenari di immunità considerati, le sieroprevalenze previste utilizzando il modello non spaziale erano 0.0 percento (IQR: 0.0 percento), 11,1 percento (IQR: 5,2 percento ) e 14,9% (IQR: 6,1%) rispettivamente per gli scenari A, B e C.
For more information:1950477648nn@gmail.com