Differenze neuroanatomiche nei sistemi di memoria del talento intellettuale e dello sviluppo tipico
Mar 18, 2022
Contatto:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Astratto
Introduzione: lo studio dei marcatori neuro-strutturali del talento intellettuale (IG) informerà la comprensione scientifica dei processi che aiutano i bambini a eccellere accademicamente. Metodi: la risonanza magnetica strutturale e ponderata per la diffusione è stata utilizzata per confrontare la forma del cervello regionale e la connettività di 12 bambini con un QI medio-alto e 18 bambini con IG, definiti come aventi un QI maggiore di 145. Risultati: IG aveva strutture sottocorticali più grandi e un bianco più robusto organizzazione microstrutturale della materia tra quelle strutture nelle regioni associate alla memoria esplicita. TD aveva strutture sottocorticali più connesse e più grandi nelle regioni associate alla memoria implicita. Conclusioni: è stato riscontrato che i sistemi di memoria all'interno del cervello dei bambini con eccezionali capacità intellettuali sono di dimensioni e connessioni diverse rispetto al cervello dei bambini con sviluppo tipico. Queste diverse traiettorie di sviluppo neurologico suggeriscono diverse strategie di apprendimento. È previsto uno spettro di tipi di intelligenza, facilitato da diversi rapporti di sistemi impliciti ed espliciti, che è stato convalidato utilizzando un ampio set di dati esterno.
PAROLE CHIAVE connettività, talento intellettuale, strategie di apprendimento, sistemi di memoria, neuroanatomia
CistanchePoteretrattare Alzheimer
Taylor Kuhn
Robin Lame
Lev Gottlieb
Kendra Knudsen
Christopher Ashdown
Laurel Martin-Harris
Dara Ghahremani
Bianca H. Dang
Robert M. Bilder
Susan Y. Bookheimer
Dipartimento di Psichiatria e Scienze Biocomportamentali, UCLA, 635 Charles E Young Dr, South, Los Angeles, CA 90025, USA
INTRODUZIONE
Nonostante la loro eccezionale attitudine all'apprendimento e alla verifica, sappiamo sorprendentemente poco su come si sviluppano e funzionano i sistemi di apprendimento e memoria nei cervelli intellettualmente "dotati". I bambini con un intelletto eccezionale in genere hanno funzioni di memoria più efficienti, basi di conoscenza più ampie e organizzate in modo più intricato e sono in grado di utilizzare strategie cognitive più complesse che si basano su queste strutture di memoria e semantica per risolvere i problemi più rapidamente o in età precoce rispetto allo sviluppo tipico ( TD) bambini (Ali et al., 2003, Athanasakis et al., 2014, Colom et al., 2004, Davidson, 1986). Pertanto, sono in grado di generalizzare la conoscenza tra i domini, fare salti intuitivi (Desco et al., 2011) e utilizzare spontaneamente l'apprendimento selettivo, nonché confrontare e integrare le informazioni durante la risoluzione dei problemi (Duncan et al., 2000). I bambini "dotati" utilizzano strategie cognitive più complesse per risolvere i problemi più rapidamente o in età precoce rispetto ai bambini con TD (Ali et al., 2003, Athanasakis et al., 2014, Colom et al., 2004, Davidson, 1986) e la base di molte di queste abilità cognitive avanzate sembra essere il loro sistema di memoria. Studi precedenti hanno mostrato un aumento globale dello spessore corticale correlato all'età, principalmente nell'integrità esecutiva della materia bianca che collega le regioni frontali e parietali nei bambini dotati (Geake & Hansen, 2005; Gerig et al., 2001).
Inoltre, sono state trovate prove di una traiettoria di sviluppo neurologico potenziata o divergente in bambini matematicamente dotati, i cui cervelli hanno la tendenza a utilizzare i sistemi frontotemporali dell'emisfero destro in modo selettivo e di successo che consente loro di funzionare eccezionalmente bene (O'Boyle et al., 1990, O'Boyle et al., 1995, O'Boyle et al., 2005, Packard & Knowlton, 2002, Pesenti et al., 2001). Eppure, dei pochi studi esistenti, nessuno si è concentrato sui sistemi di memoria. Mancano ancora informazioni critiche che potrebbero essere fondamentali per comprendere i meccanismi dei loro sistemi di integrazione delle informazioni, come la forma regionale e la connettomica delle reti di apprendimento neurale. Due sistemi di memoria paralleli sono di particolare interesse nello studio del neurosviluppo. L'apprendimento implicito descrive l'apprendimento automatico di compiti sociali, linguistici e procedurali acquisiti e utilizzati senza sforzo cosciente. Questo meccanismo consente ai bambini di creare frasi grammaticalmente corrette e comprendere le norme sociali, come il contatto visivo senza istruzioni esplicite (Gonring et al., 2017).
Explicit learning involves an intentional, conscious effort to retain or access information, for example, reminiscing on old memories or reciting memorized facts. Implicit learning is essential in the early stages of neurodevelopment, whereas adults depend more on explicit memory, likely because a rule-based approach is faster, easier to communicate, and leads to all-or-none mastery (Gray et al., 2003). In typical development, the subcortical structures that enable implicit learning (e.g., striatum) are developed in the first year of life, while explicit memory structures (e.g., hippocampus) take longer to mature. Here, we investigated the neuroanatomy underlying these two parallel memory systems, explicit and implicit memory, in two samples. First, we examined subjects specifically recruited for being highly intellectually gifted (IQ >145) insieme ai bambini TD. Abbiamo utilizzato metodi neuropsicologici e MRI strutturali e ponderati per la diffusione per confrontare la forma cerebrale regionale e la connettività di 12 bambini con un QI medio alto (90–130, media=124 ± 10,9; età=10.7 ± 1.86; 58% femmine) e 18 con QI elevato (145–170, media=153 ± 11,4; età=10.2 ± 2,02; 56% femmine). Quindi, abbiamo testato l'euristica sviluppata in questo campione su un ampio database esterno per tentare di confermare ed espandere i risultati.
bodybuilding per le lunghe
2 METODI
2.1 Partecipanti
I partecipanti includevano 18 bambini intellettualmente dotati (confermato da test neurocognitivi), i quali mostravano profili intellettuali (matematici, verbali, visuomotori, memoria/concentrazione e giudizio/ragionamento) ben bilanciati e 12 bambini con sviluppo tipico. Tutte le procedure erano conformi alla Dichiarazione di Helsinki, esaminate e approvate dal Comitato di revisione istituzionale dell'Università della California, Los Angeles (UCLA) prima dell'iscrizione e tutti i partecipanti hanno fornito il consenso informato scritto. I partecipanti sono stati reclutati dalle scuole locali di Los Angeles e dai programmi di doposcuola, comprese le scuole e i programmi per studenti eccezionalmente dotati. Tutti i partecipanti hanno completato il consenso/assenso informato scritto. L'idoneità per questo studio è stata determinata alla prima visita dopo la somministrazione di un test del QI standardizzato (Stanford Binet 5 (Huang-Pollock et al., 2011)). Il talento eccezionale è stato definito come QI maggiore o uguale a 145. Bambini sani con sviluppo tipico di età, razza e genere con un QI maggiore o uguale a 90 e minore o uguale a 145 senza storia di attenzione, linguaggio o apprendimento sono stati reclutati anche disturbi. I potenziali partecipanti allo studio sono stati esclusi dallo studio se uno qualsiasi di questi criteri di esclusione fosse soddisfatto: storia di trauma cranico, disturbo convulsivo o altri disturbi neurologici o psichiatrici; disturbo del linguaggio passato o attuale, disturbo da deficit di attenzione e iperattività, disturbo della condotta, disturbo ossessivo-compulsivo, disturbo dello spettro autistico o dipendenza da droghe; collocamento attuale/passato in una classe di istruzione speciale o un QI inferiore o uguale a 84; controindicazioni per la risonanza magnetica (p. es., protesi metalliche, pacemaker, apparecchi ortodontici o altri metalli applicati alla testa e gravidanza).
2.2 Confronto demografico di gruppo
I fattori demografici (p. es., età, istruzione) tra i gruppi IG e TD sono stati confrontati utilizzando un'analisi della varianza unidirezionale (ANOVA). Le differenze di gruppo nei fattori dicotomici (p. es., genere, etnia,) sono state valutate mediante analisi del chi-quadrato. Abbiamo usato p < .05="" come="" soglia="" di="" significatività="" statistica="" per="" queste="" analisi="">
2.3 Test neuropsicologici
Tutti i partecipanti hanno completato una misura neuropsicologica standardizzata (Stanford-Binet 5; Huang-Pollock et al., 2011) progettata per testare il QI con un tetto alto (QI=170) consentendo la quantificazione del QI in partecipanti eccezionalmente dotati intellettualmente. 2.4 Acquisizione MRI Tutti i dati di neuroimaging sono stati raccolti utilizzando una bobina di testa del canale 12- su uno scanner MRI 3T Siemens Tim Trio (Siemens Medical Solution, Erlangen, Germania) ospitato presso l'UCLA Staglin IMHRO Center for Cognitive Neuroscience. Scansioni strutturali MP-RAGE T{{{1{{20}}}} sono state acquisite con 120–1.0 fette sagittali, FOV=256 mm (AP) × 192 mm (FH), matrice=256–192, TR=450.0 ms, TE=10.0 ms, angolo di ribaltamento { {23}}, dimensione voxel=1,0 mm × 0,94 mm × 0,94 mm. I dati DTI sono stati acquisiti utilizzando l'imaging planare spin-echo single-shot (EPI) e utilizzando i seguenti parametri: TR=8400 ms; TE=91 ms; 1282 matrice, FOV=256 mm, b=1000 s/mm2, NEX=1, 64 fette, spessore fetta 2 mm, salto 0 mm, PAT=2. La diffusione è stata raccolta in 64 direzioni (b=1000 s/mm2) con 4 immagini con b=0 s/mm2. Tutte le immagini sono state controllate dalla qualità e ispezionate visivamente prima di essere preelaborate e analizzate.
2.5 Elaborazione e analisi della forma sottocorticale Sono state raccolte scansioni anatomiche 3D morfometriche T1-pesate per tutti i partecipanti. Utilizzando FMRIB Software Library versione 6.0 (Kalbfleisch, 2004) (FSL) i dati T1 sono stati eseguiti attraverso un protocollo di segmentazione sottocorticale automatizzato basato su modello (FSL FIRST (Kuhn et al., 2017)) utilizzando un limite metodo di correzione. I file dei vertici e delle barre delle regioni di interesse sottocorticali segmentate automaticamente (ROI; che includevano l'amigdala, il nucleo accumbens, il caudato, l'ippocampo, il pallido, il putamen e il talamo) nell'emisfero sinistro e destro sono stati quindi ispezionati visivamente per verificarne la qualità. I file dei vertici finali per le strutture sottocorticali segmentate sono stati concatenati sia tra il gruppo che all'interno del gruppo. Tutte le ROI segmentate automaticamente per ciascun partecipante sono state allineate allo stesso spazio standard.
Ogni vertice fornisce dati sulla posizione della superficie della ROI nello stesso punto nello spazio per ogni partecipante. Per eseguire analisi di gruppo, i dati di ciascun partecipante sono stati registrati in uno spazio standard in modo che ogni vertice fosse allineato allo stesso punto nello spazio per i confronti di gruppo. La superficie media del campione è stata utilizzata come obiettivo per questo allineamento. Questi valori dei vertici scalari sono stati quindi analizzati utilizzando analisi statistiche parametriche per studiare la relazione tra i gruppi (QI vs. TD) e la forma di ciascuna struttura sottocorticale. Queste analisi sono state eseguite su ciascun vertice utilizzando una simulazione Monte Carlo nello script randomizzato di FSL (Kyllonen & Christal, 1990, Mills & Tissot, 1995). Le regressioni hanno valutato la relazione tra la distanza radiale in ciascun vertice e le variabili di interesse (ad esempio, designazione del gruppo, QI). È stata utilizzata una pipeline di elaborazione multifase e controllata dalla qualità per correggere più fonti di artefatto e tutti i risultati sono stati corretti per confronti multipli (q> .05) utilizzando il tasso di falsa scoperta (FDR) (Na et al., 2007).
2.6 Elaborazione e analisi della microstruttura della sostanza bianca
È stata eseguita una pipeline di elaborazione DWI di routine utilizzando FSL v 6.0 (Kalbfleisch, 2004), che prevedeva l'estrazione del cervello, la correzione della distorsione da correnti parassite e l'adattamento del movimento e del tensore. Per ciascun partecipante sono state calcolate le metriche DWI della microstruttura della sostanza bianca, dell'anisotropia frazionaria (FA) e della diffusività media (MD). Le analisi sono state condotte utilizzando Tract Based Spatial Statistics (TBSS) (Navas-Sánchez et al., 2014), un metodo che consente l'interrogazione statistica voxel-wise delle metriche DWI lungo i tratti di interesse WM (TOI). I TOI sono stati derivati dall'atlante White Matter della John Hopkins University (Neihart et al., 2002) e includevano bilaterale: radiazione talamica anteriore (ATR), fascicoli occipitali anteriori inferiori (IFO), fascicolo longitudinale inferiore (ILF), fascicolo longitudinale superiore (SLF) ), il fascicolo uncinato (UNC), il fascio cingolato (CGC), la sostanza bianca dell'ippocampo (HC), nonché il forcipe maggiore e il forcipe minore. Analisi statistiche parametriche hanno studiato le differenze tra i gruppi nella microstruttura WM (FA e MD). Le analisi di correlazione hanno studiato la relazione tra QI e FA/MD. I risultati di TBSS sono stati corretti per confronti multipli con il miglioramento del cluster senza soglia: TFCE (O'Boyle, 2008)).
2.7 Conferma volumetrica dell'euristica esplicita/implicita utilizzando un dataset esterno
Il campione attuale non includeva bambini con punteggi del QI inferiori alla media o alterati o condizioni atipiche dello sviluppo neurologico, come il disturbo da deficit di attenzione e iperattività (ADHD) o l'autismo. Pertanto, abbiamo cercato di testare l'euristica della razione esplicita/implicita in un ampio set di dati esterno che include questa gamma più ampia di traiettorie di sviluppo. Pertanto, il progetto Adolescent Brain and Cognitive Development (ABCD) (UCLA PI: Bookheimer) è stato utilizzato come set di dati esterno per tentare di convalidare l'euristica della razione da esplicita a implicita derivata dall'analisi dell'adolescente dotato (descritta nella Sezione 3). Età, sesso, punteggio della funzione cognitiva globale del National Institute of Health (NIH) Toolbox e volume della struttura sottocorticale sono stati compilati da tutti i partecipanti ABCD disponibili. Il volume delle regioni cerebrali (memoria esplicita) risultate significativamente maggiori nel gruppo IG è stato sommato per creare la componente cerebrale della memoria esplicita. Il volume delle regioni cerebrali (memoria implicita) risultate essere maggiori nel gruppo TD è stato sommato per creare la componente cerebrale della memoria implicita. Quindi, la variabile del rapporto esplicito/implicito è stata calcolata dividendo la componente cerebrale della memoria esplicita per la componente cerebrale della memoria implicita. È stata quindi calcolata un'analisi di correlazione valutando la relazione tra questo rapporto cervello memoria esplicito/implicito e le prestazioni cognitive globali misurate dal NIH Toolbox. Dato il formato in cui i dati ABCD sono resi disponibili (vale a dire, valori estratti in un foglio di calcolo anziché dati MRI grezzi), non siamo stati in grado di eseguire l'analisi della forma. Tuttavia, siamo stati in grado di eseguire analisi del volume. È importante sottolineare che le analisi della forma sono più specifiche a livello regionale e più sensibili dell'analisi del volume (Rogers, 1986). Pertanto, gli effetti riscontrati nelle analisi del volume saranno presenti nelle analisi della forma, tuttavia, i risultati dell'analisi della forma potrebbero essere presenti quando l'analisi del volume non è sufficientemente sensibile per rilevare il cambiamento (Rota et al., 2009). Pertanto, la replica riuscita dell'euristica utilizzando i dati volumetrici ABCD dovrebbe replicare efficacemente i risultati della forma dal campione iniziale nel presente documento.
3. RISULTATI
3.1 Confronto tra gruppi demografici
I gruppi IG e TD non differivano significativamente per età, anni di istruzione, etnia o sesso (tutti p > .05). Il gruppo IG (153 ± 11,4) aveva un QI significativamente più alto rispetto al gruppo TD (128 ± 10,9, p <.01; tabella="" 1).="" il="" gruppo="" ig="" era="" composto="" da="" profili="" intellettuali="" "ben="" equilibrati".="" tutti="" i="" partecipanti="" dotati="" erano="" al="" livello="" superior="" adult="" 1="" o="" superiore="" per="" abilità="" matematiche="" e="" verbali,="" con="" un'eccezione.="" un="" partecipante="" dotato="" era="" al="" livello="" sopra="" la="" media="" per="" "vocabolario="" e="" fluidità="" verbale"="" e="" l'adulto="" superiore="" 1="" per="" "ragionamento="" aritmetico".="" lo="" stesso="" partecipante="" ha="" anche="" testato="" al="" livello="" superior="" adult="" 3="" per="" il="" giudizio="" e="" il="" ragionamento.="" pertanto,="" tutti="" i="" partecipanti="" a="" ig="" sembravano="" essere="" ben="" bilanciati="" in="" termini="" di="" competenza="" matematica="" e="">

3.2 Forma sottocorticale
Vertici significativamente maggiori sono stati trovati nell'ippocampo bilaterale e nel putamen destro di IG mentre vertici maggiori sono stati trovati nell'amigdala sinistra, nel caudato destro e nel nucleo bilaterale accumbens in TD. In particolare, IG ha evidenziato maggiori vertici nella testa dell'HC sinistro, nel corpo dell'HC destro e nella coda dell'HC bilaterale, nonché nelle regioni posteriori del putamen destro. TD ha evidenziato maggiori vertici in generale durante l'accumbens bilaterale, principalmente nel corpo del caudato destro e nei nuclei centromediani dell'amigdala sinistra. Nell'intero campione, il QI era correlato a vertici maggiori nella coda bilaterale HC (Figura 2).
3.3 Microstruttura della sostanza bianca
FA nella sostanza bianca dell'ATR destro e della coda destra HC (cioè, fornice) era significativamente più alto (.001 < p="">< .05)="" nel="" gruppo="" ig="" rispetto="" ai="" controlli.="" la="" md="" era="" significativamente="" più="" bassa="" in="" atr="" bilaterale,="" hc="" e="" unc="" nel="" gruppo="" ig="" rispetto="" ai="" controlli.="" in="" particolare,="" i="" risultati="" md="" sono="" stati="" trovati="" in="" una="" percentuale="" più="" alta="" dell'emisfero="" destro="" rispetto="" all'emisfero="" sinistro.="" i="" risultati="" md="" sono="" stati="" trovati="" anche="" in="" diverse="" regioni="" a="" seconda="" dell'emisfero.="" nell'hc,="" i="" risultati="" dell'emisfero="" destro="" sono="" stati="" trovati="" vicino="" alla="" coda="" dell'hc="" (cioè,="" fornice),="" e="" i="" risultati="" di="" sinistra="" sono="" stati="" trovati="" nel="" corpo="" dell'hc="" (cioè,="" regioni="" ca).="" nell'unc,="" i="" risultati="" erano="" più="" inferiori="" nell'emisfero="" sinistro.="" nell'intero="" campione,="" fa="" era="" significativamente="" correlato="" positivamente="" con="" il="" qi="" nell'atr="" bilaterale="" (destra="" più="" che="" nell'emisfero="" sinistro)="" e="" nell'hc="" destro.="" inoltre,="" md="" era="" correlato="" negativamente="" con="" il="" qi="" nell'atr="" bilaterale="" (destra="" maggiore="" di="" sinistra),="" hc="" sinistro,="" unc="" sinistro,="" fascio="" cingolato="" sinistro="" e="" ilf="" sinistro="" (figure="" 1="" e="">
3.4 Conferma dell'euristica esplicita/implicita utilizzando un set di dati esterno
Il set di dati ABCD era composto da 7652 partecipanti (età media=119 ± 7,5 mesi; 62,9% femmine) con tutti i dati richiesti per questo studio. Il rapporto memoria esplicita/implicita era significativamente positivo in relazione alla performance cognitiva globale (r=0.23, p < 0.05)="" così="" come="" alla="" performance="" cognitiva="" globale="" quadratica="" (r="." 022,="" p="">< .05)="" (figura="" 4).="" una="" regressione="" gerarchica="" graduale="" che="" utilizza="" la="" performance="" cognitiva="" globale="" lineare="" e="" quadratica="" ha="" reso="" un="" modello="" finale="" [f="" (2,="" 7652)="4.50," p=".011)" che="" include="" la="" performance="" cognitiva="" globale="" quadratica="" (="" {{20}="" }.24,="" p=".04)" come="" predittore="" significativo="" del="" rapporto="" esplicito/implicito.="" dato="" che="" l'analisi="" della="" forma="" è="" più="" sensibile="" dell'analisi="" del="" volume,="" anche="" questo="" risultato="" che="" utilizza="" la="" volumetrica="" nel="" set="" di="" dati="" abcd="" dovrebbe="" tradursi="" in="" un'analisi="" della="" forma="" (che="" non="" era="" possibile="" dato="" il="" formato="" dei="" dati="">
Una regressione simile è stata condotta utilizzando le misure di cognizione globale per prevedere una variabile composita composta da FA della sostanza bianca ATR e HC. C'era una relazione quadratica significativa [F (2, 7562)=13.17, p < .0001]="" tra="" la="" cognizione="" globale="" (="-0.034," p="">< .001)="" e="" la="" variabile="" composita="" composta="" da="" fa="" dell'atr="" destra="" e="" sostanza="" bianca="" hc.="" infine,="" una="" regressione="" graduale="" prevedeva="" una="" variabile="" composita="" composta="" da="" md="" dell'unc,="" sostanza="" bianca="" hc="" e="" atr.="" il="" punteggio="" cognitivo="" globale="" quadratico="" (="0.12," p=""><.001) prediceva="" in="" modo="" significativo="" questa="" variabile="" md="" composita="" [f="" (2,="" 7562)="15.31," p=""><>

bodybuilding per le lunghe
4. DISCUSSIONE
Questa indagine ha rilevato che esiste una doppia dissociazione tra le dimensioni e la connettività di due sistemi di memoria separati quando si confrontano i bambini intellettualmente dotati e le loro controparti TD. Rispetto al gruppo TD, i bambini dotati avevano strutture sottocorticali più grandi e un'organizzazione microstrutturale della materia bianca più altamente connessa tra quelle strutture nelle regioni associate alla memoria esplicita e al QI: ippocampo bilaterale e putamen destro. In particolare, il putamen, probabilmente attraverso l'integrazione delle connessioni con la corteccia prefrontale, e le sottoregioni dell'ippocampo associate al nuovo apprendimento e all'integrazione delle informazioni (giro dentato e CA3) erano più grandi nei bambini intellettualmente dotati (Figure 1 e 2). La pronunciata integrità delle connessioni della materia bianca tra queste regioni è coerente con una base anatomica per la propensione intrinseca dei bambini intellettualmente dotati ad apprendere, integrare e utilizzare informazioni esplicite in modo rapido ed efficiente. Inoltre, questi risultati possono riguardare la propensione per i bambini dotati a mostrare livelli più elevati di motivazione intrinseca a leggere, pensare e trascorrere del tempo da soli. È interessante notare che i bambini con sviluppo tipico avevano strutture sottocorticali più grandi e connesse nelle regioni associate alla memoria implicita: striato (cioè caudato, nucleo accumbens) e amigdala (Figura 2; Haier et al., 1988).
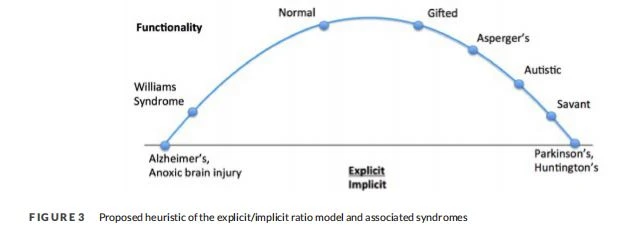
Questa doppia dissociazione suggerisce che i bambini intellettualmente dotati e con sviluppo tipico possono avere traiettorie di sviluppo neurologico intrinsecamente diverse mediate da diverse strategie di apprendimento. Questa scoperta ci ha portato a immaginare un ampio spettro di tipi di intelligenza, facilitato in parte da diversi rapporti di sviluppo del sistema implicito ed esplicito. La memoria esplicita e implicita occupa diverse regioni del cervello e crea reti di apprendimento indipendenti, sebbene interconnesse. A causa delle risorse limitate e dello spazio limitato nel cervello, potrebbe esserci un compromesso tra lo sviluppo di sistemi di memoria esplicita e implicita.
Le differenze che abbiamo riscontrato potrebbero riflettere un'ampia distribuzione della variazione del sistema di memoria, con TD e bambini dotati che rappresentano le nicchie più funzionali (Figura 3). In precedenza era stato ipotizzato che i risultati del cervello di un prodigio matematico fossero guidati dalla codifica e dal recupero della memoria episodica altamente efficiente (Scharnowski et al., 2015). Affinché ciò sia vero, sarebbero necessarie strutture di memoria episodica, nonché sistemi del lobo frontale coinvolti nell'attenzione e nel recupero. Il presente studio riporta proprio questo: strutture di memoria episodica grandi e solidamente connesse e tratti di sostanza bianca frontali (ad es. ATR).
La scoperta dell'ATR è anche coerente con una serie di lavori precedenti che hanno scoperto che un'intelligenza elevata è associata all'impegno delle reti cerebrali prefrontali e cingolate (Kuhn et al., 2017, Schmithorst et al., 2005), così come il lavoro precedente che ha scoperto che i cervelli matematicamente dotati avevano una FA più alta nel corpo calloso e nei tratti di associazione che collegano il lobo frontale alle strutture dei gangli della base, incluso l'ATR, e ai tratti frontotemporali/parietali, incluso l'UNC (Shaw et al., 2006).
Le regioni cerebrali bilaterali migliorate trovate qui sono in linea con i risultati precedenti che indicano che regioni cerebrali bilaterali uniche sono attivate da bambini matematicamente precoci durante compiti di rotazione mentale (Squire et al., 1993, Weiskopf, 2012). Inoltre, la tendenza dei risultati a essere lateralizzati è in linea con i risultati precedenti che suggeriscono che la lateralità emisferica, in particolare l'emisfero destro, così come una maggiore coordinazione all'interno e tra le regioni del cervello, è un importante supporto neurale del talento intellettuale (O'Boyle et al., 1995).
Infine, i risultati dell'intero campione che suggeriscono che il QI era correlato con le metriche DTI nell'ATR, HC e UNC sono in linea con i risultati precedenti in uno studio sul talento matematico (Shaw et al., 2006), che riportava corpo calloso, fornice e le correlazioni metriche DTI del tratto di associazione con l'intelligenza. Questa relazione sostanza bianca-QI è potenzialmente guidata, almeno in parte, dalla famiglia genica della plexina, che è stata recentemente trovata in uno studio di associazione sull'intero genoma per predire il QI (Winberg et al., 1998). È noto che le plessine sono collegate alla guida dello sviluppo degli assoni (Worzfeld & Offermanns, 2014), della connettività neurale (Zabaneh et al., 2018) e della rigenerazione (Zhang et al., 2017), e quindi possono essere correlate al bianco risultati importanti nel nostro gruppo IG.

FIGURA 1 Le statistiche spaziali basate sul tratto rivelano una maggiore pervietà microstrutturale della sostanza bianca nei bambini dotati intellettualmente rispetto ai bambini con sviluppo tipico nelle regioni di memoria esplicita
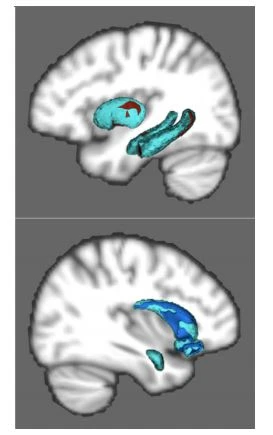
FIGURA 2 L'analisi della forma rivela una forma più grande nelle regioni di memoria esplicita nelle regioni di memoria intellettualmente dotata e implicita nei bambini con sviluppo tipico
Questo primo campione non includeva bambini con punteggi QI inferiori alla media o alterati o condizioni atipiche dello sviluppo neurologico, come ADHD o autismo. Questi gruppi possono trovarsi agli estremi dello spettro, dove la memoria esplicita o implicita può essere sottosviluppata o eccessivamente sviluppata in misura dannosa. Pertanto, abbiamo quindi replicato questa analisi in un campione molto più ampio che includeva bambini con punteggi QI inferiori alla media o alterati e alcune differenze di sviluppo (ad esempio, ADHD). Abbiamo testato questa euristica esplicita/implicita utilizzando un ampio set di dati esterno: il progetto ABCD (N=7652). In linea con la nostra ipotesi, abbiamo trovato una relazione quadratica significativa tra l'euristica esplicita/implicita e il QI. Questa replica dei nostri risultati iniziali suggerisce che potrebbe esserci in effetti un equilibrio evolutivo di sistemi di memoria implicita ed esplicita che possono esprimersi fenotipicamente con diversi profili cognitivi.
La ricerca futura potrebbe voler studiare lo sviluppo relativo di strutture implicite ed esplicite in altre popolazioni, come è stato esplorato a fondo nei disturbi neurodegenerativi come il morbo di Alzheimer (anatomia della memoria esplicita degenerante e abilità con memoria implicita preservata) e il morbo di Parkinson (anatomia della memoria implicita degenerante e abilità con memoria esplicita conservata). Identificare i marcatori strutturali e funzionali del dono ci aiuterà a comprendere i sistemi più profondi che consentono ai bambini di apprendere dentro e fuori l'ambiente scolastico. L'apprendimento sia implicito che esplicito è essenziale e i deficit in entrambi possono portare a difficoltà sociali, accademiche e professionali. Sebbene i bambini "dotati" ottengano buoni punteggi nei test del QI, molti soffrono anche di difficoltà di apprendimento che li ostacolano in compiti non espliciti basati sull'apprendimento e la maggior parte dei bambini con TD potrebbe trarre vantaggio da un ulteriore sviluppo dell'apprendimento esplicito (Hayden et al., 2020). Questo studio fornisce alcune informazioni su come gli interventi futuri possono mirare a sistemi espliciti o impliciti per massimizzare l'apprendimento attraverso lo spettro dello sviluppo. Potremmo scoprire che l'imaging cerebrale alla fine ci consentirà di progettare interventi educativi basati sulla struttura cerebrale di un individuo, per supportare un sano sviluppo intellettuale e comportamentale.

Cistanche può curare l'Alzheimer
Procedure di formazione cognitiva basate su basi empiriche, come il Program for Education and Enrichment of Relational Skills (PEERS; Laugeson et al., 2012), potrebbero aiutare a potenziare i bambini con TD, i bambini dotati e le popolazioni cliniche a rischio (p. es., spettro autistico disturbo dell'apprendimento, disturbo da deficit di attenzione e iperattività e disabilità intellettiva), consentendo così alle istituzioni educative di supportare bambini di tutti i tipi e capacità di apprendimento. Ci auguriamo che questo studio ispiri ulteriori indagini sulle strutture che facilitano l'apprendimento implicito ed esplicito, il loro ruolo nelle differenze di sviluppo e le possibili terapie di apprendimento future.