

Prendere di mira i mitocondri dai metaboliti secondari vegetali: una strategia promettente nella lotta contro il morbo di Parkinson
Mar 20, 2022
Contatto:joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Astratto
Parkinsonpatologia(PD) è uno dei più diffusi e debilitantineurodegenerativocondizioni ed è attualmente in aumento. Diversi percorsi disregolati sono alla base della patogenesi del PD; tuttavia, gli obiettivi critici rimangono poco chiari. Di conseguenza, c'è un urgente bisogno di rivelare i percorsi chiave disregolati nel PD. Rapporti prevalenti hanno evidenziato l'importanza dei mediatori mitocondriali e cross-talked nei disturbi neurologici, nei cambiamenti genetici e nelle relative complicanze del PD. I molteplici meccanismi fisiopatologici del PD, così come la bassa efficacia e gli effetti collaterali delle terapie neuroprotettive convenzionali, guidano la necessità di trovare nuovi agenti alternativi. Recentemente, è stata prestata molta attenzione all'uso di metaboliti secondari vegetali (ad es. flavonoidi/composti fenolici, alcaloidi e terpenoidi) nella modulazione delle manifestazioni associate al PD mirando ai mitocondri. In questa linea, i metaboliti secondari vegetali hanno mostrato un potenziale promettente per la modulazione simultanea dell'apoptosi mitocondriale e delle specie reattive dell'ossigeno. Questa recensione mirava ad affrontare i mitocondri e le molteplici vie disregolate nel PD da parte di metaboliti secondari di origine vegetale.
Parole chiave:neurodegenerativopatologia;Parkinsonpatologia; metaboliti secondari; fitochimici; mitocondri; via di segnalazione
cistanche bienfaits
1. Introduzione
Gli esseri umani sono sempre stati colpiti da varie complicazioni neurologiche [1,2].Neurodegenerativole malattie influenzano notevolmente il sistema nervoso centrale e periferico e portano alla perdita delle funzioni sia fisiche che mentali [3,4]. Diversi meccanismi sono alla base della neurodegenerazione, tra cui l'infiammazione neuronale, lo stress ossidativo, l'apoptosi, l'autofagia che causano la morte cellulare [1,3,5].
Considerando il coinvolgimento di molteplici vie disregolate nella patogenesi delle malattie neurodegenerative, la rivelazione delle vie critiche di segnalazione in tali disturbi sembra aprire la strada allo sviluppo di terapie alternative. Di conseguenza, i disordini associati ai mitocondri, così come lo stress ossidativo interconnesso e le specie reattive dell'ossigeno (ROS) sembrano essere mediatori comuni coinvolti nella neurodegenerazione [1,5]. In questa linea, prendere di mira le vie di segnalazione associate ai mitocondri potrebbe aprire nuove strade nella lottaParkinsonpatologia(PD), lesione cerebrale ischemica (IBI), lesione del midollo spinale (SCI), morbo di Alzheimer (AD), morbo di Huntington (HD), sclerosi multipla (SM) e malattia laterale amiotrofica (SLA) [6-8].
Sajad Fakhri 1,†, Sadaf Abdian 2,† , Seyede Nazanin Zarneshan 2, Esra Küpeli Akkol 3 , Mohammad Hosein Farzaei 1,* e Eduardo Sobarzo-Sánchez 4,5,*
1 Centro di ricerca sulle scienze farmaceutiche, Istituto di salute, Università di scienze mediche di Kermanshah, Kermanshah 6734667149, Iran;
2 Student Research Committee, Kermanshah University of Medical Sciences, Kermanshah 6734667149, Iran; abdian.ph@gmail.com (SA);
3 Dipartimento di Farmacognosia, Facoltà di Farmacia, Università Gazi, 06330 Ankara, Turchia;
4 Dipartimento di Chimica Organica, Facoltà di Farmacia, Università di Santiago de Compostela, 15782 Santiago de Compostela, Spagna
5 Instituto de Investigación y Postgrado, Facultad de Ciencias de la Salud, Universidad Central de Chile, Santiago 8330507, Cile
I mitocondri sono componenti vitali delle cellule eucariotiche e sono responsabili della produzione di energia cellulare [7,8], specialmente per le cellule più attive nel corpo [9]. I mitocondri forniscono questa energia attraverso i meccanismi di fosforilazione ossidativa dei complessi associati [10]. Oltre al compito di produrre energia, i mitocondri sono coinvolti anche nelle procedure relative alla sopravvivenza/morte cellulare, oltre a mantenere l'equilibrio di ioni e metalli cellulari [5]. Queste varie funzioni nei mitocondri sono svolte dagli elementi costitutivi in condizioni normali di equilibrio cellulare [8]. Sotto disfunzioni neuronali, il suddetto equilibrio cellulare viene perso e la funzione mitocondriale nelle cellule neuronali è compromessa [8,11]. In una tale situazione di danno neuronale, i mitocondri incontrano una disregolazione nella produzione di ROS e una sensibilità allo stress ossidativo, che porta al danno cellulare [12,13]. I cambiamenti funzionali e morfologici nei mitocondri e le anomalie nei suoi enzimi portano a danni ai nervi e conseguenti malattie neurodegenerative [8]. Di conseguenza, la disfunzione mitocondriale è una delle cause delle malattie neurodegenerative [5,8,12].

Cistanchehaneuroprotettivoeffetti
Nelle malattie neurodegenerative, i mitocondri svolgono ruoli critici nel fornire energia e stabilità alle cellule nervose per prevenire la distruzione dei neuroni dopaminergici nel PD. Inoltre, è innegabile anche il ruolo delle tossine mitocondriali. Ad esempio, 1- metil-4-fenil-1,2,3,{5}}tetraidropiridina (MPTP) ha bloccato l'attività del complesso I nei mitocondri, ha aumentato la produzione di ROS e ha aumentato il rilascio di proteine apoptogeniche, che alla fine provocano la morte cellulare [14,15]. Inoltre, i mitocondri hanno una stretta interconnessione con diversi percorsi disregolati nel PD.
Quindi, il targeting simultaneo dei mitocondri e i mediatori ravvicinati potrebbero aprire la strada per combattere il PD. Non esiste una cura certa per PD e altri NDD, ma sono state impiegate varie strategie per controllare i sintomi associati influenzando i meccanismi disregolati [16]. Considerando il livello più elevato di effetti collaterali e la minore efficacia delle terapie sintetiche nella lotta alle complicanze neuronali, i prodotti naturali hanno attirato l'attenzione su nuove terapie alternative [17-19]. Di conseguenza, i metaboliti secondari di origine vegetale sono di grande importanza nel modulare i disturbi mitocondriali e le vie infiammatorie/ossidative interconnesse nei disturbi neuronali [8,19]. Questi metaboliti secondari attenuano simultaneamente la funzione mitocondriale attraverso diversi meccanismi, tra cui l'inibizione dei complessi mitocondriali e delle vie correlate ai ROS, la soppressione delle vie apoptotiche e la prevenzione della produzione di aggregati mal ripiegati di -sinucleina [20,21].
Uno studio precedente ha esaminato il ruolo dei flavonoidi nel prendere di mira i mitocondri verso la citoprotezione [22]. Il coinvolgimento delle fosfoinositide 3-chinasi (PI3K)/protein chinasi B (Akt) e del fattore 2 correlato al fattore nucleare eritroide-2- (Nrf2) è anche evidenziato nella modulazione dell'attività mitocondriale durante PD [23,24]. Tuttavia, poche potenziali terapie alternative sono state introdotte nella modulazione delle attività mitocondriali. Questa è la prima recensione sul targeting delle vie mitocondriali da parte dei metaboliti secondari vegetali e sulla modulazione delle condizioni patologiche nel PD.
2. I mitocondri nel PD
La MP è una delle malattie neurologiche più comuni con sintomi specifici, inclusi tremore a riposo, rigidità e bradicinesia [8,25]. Aumentando l'età media delle persone, si prevede che il numero di pazienti affetti aumenterà [11,26]. L'età media dei pazienti che sviluppano la malattia di Parkinson è di oltre 50 anni, ma considerando l'effetto di vari fattori ambientali e genetici, la malattia di Parkinson può manifestarsi in età più giovane con sintomi diversi [26]. I sintomi includono bradicinesia alterata, movimenti involontari, rigidità e problemi legati ai disturbi mentali [3,26]. Sebbene numerosi meccanismi molecolari siano coinvolti nella patogenesi della neurodegenerazione, la distruzione sinaptica della dopamina e la disfunzione mitocondriale sono i principali attori [8]. La neuropatologia fondamentale del PD è caratterizzata dal graduale esaurimento dei neuroni dopaminergici nella substantia nigra pars compacta (SNc), nonché dall'esistenza di corpi di Lewy (LBs) e neuriti di Lewy (LNs) [26]. Queste proteine hanno avuto origine dalla -sinucleina, una proteina presinaptica nelle cellule neuronali, e dalla distruzione dei neuroni dopaminergici [25], coinvolti nel PD familiare e intermittente. Per svolgere la loro funzione, i neuroni devono fornire l'energia fornita dai mitocondri [8,27]. Inoltre, i mitocondri svolgono anche un ruolo fondamentale nel mantenimento della stabilità delle cellule nervose. Quindi, interrompendo i meccanismi associati ai mitocondri, le cellule nervose subiscono danni, seguiti dall'insorgenza di malattie neurodegenerative, in particolare PD [8,12].
In dettaglio, durante la PD, la disregolazione della catena di trasporto degli elettroni mitocondriale (ETC) e dei complessi I, II, III, IV, V porta a cambiamenti nell'energia cellulare, aumenta lo stress ossidativo, provoca mutazioni nel genoma mitocondriale, provoca deformità del DNA e altera i geni coinvolti nel PD [28]. Per quanto riguarda il ruolo dei complessi mitocondriali, cinque sottoinsiemi enzimatici sono coinvolti nella produzione di energia del sistema di fosforilazione ossidativa nei mitocondri attraverso la migrazione elettronica. I complessi sono chiamati complesso I (ubichinone ossidoreduttasi o NADH deidrogenasi), complesso II (succinato deidrogenasi), complesso III (citocromo c-ossidoreduttasi o citocromo bc1), complesso IV (citocromo c ossidasi) e complesso V (ATP sintasi) [25 ]. I mitocondri hanno tre complessi enzimatici che producono diverse quantità di ROS [12]. Il complesso I, o NADH CoQ reduttasi, è uno dei più importanti produttori primari di ROS nei mitocondri. I cambiamenti nella struttura di questo complesso e i mediatori ossidativi sono coinvolti nello sviluppo del PD [29]. I bloccanti dell'ETC mitocondriale del complesso I causano PD in persone e animali e i knockout di parkin o DJ-1, che sono collegati al PD ereditario, dimostrano un'attività mitocondriale ridotta [30]. Gli inibitori che interferiscono con la funzione del complesso I, come il rotenone e l'MPTP, portano al PD. MPTP ha notevolmente ridotto la dopamina e i suoi metaboliti, che includono acido 3,{9}}diidrossifenilacetico (DOPAC) e acido omovanillico (HVA) nello striato [15]. La creazione di MPTP nel PD è causata da anomalie mitocondriali. Implica una sequenza di incidenti come la depolarizzazione della membrana mitocondriale interna (IMM), la fosforilazione ossidativa danneggiata, l'elevata produzione di ROS, il rigonfiamento della matrice dei mitocondri, lo sviluppo delle creste IMM, la perdita di Ca2 più l'omeostasi e il rilascio di proteine apoptogene attraverso la membrana mitocondriale esterna ( OMM), che alla fine provoca la morte cellulare [14]. Il complesso III, analogamente al complesso I, è la fonte di ROS nei mitocondri [12,13]. In questa linea, le tossine associate al PD MPTP, rotenone, piridaben, tricloroetilene e fenpirossimato interferiscono con il normale funzionamento degli enzimi/complessi mitocondriali causando danni alle cellule neuronali [25]. Durante la procedura di produzione di energia mitocondriale, vengono prodotti anche ROS, che influenzano la normale funzione delle cellule neuronali [25].
bodybuilding per le lunghe
Inoltre, la mutazione nei genomi delle cellule mitocondriali e nervose è un altro meccanismo di interruzione associato. Di conseguenza, le mutazioni di 12SrRNA e G11778A nel DNA mitocondriale seguite da cambiamenti nei geni coinvolti nel PD nelle cellule neuronali come PINK1 (chinasi 1 indotta da PTEN), PARK2 (parkin), DJ-1 e LRRKS (ricco di leucina ripetere la chinasi) portano alla produzione di ROS. Questo processo è dovuto allo squilibrio tra mitocondri e ROS, nonché alla perdita della protezione cellulare contro lo stress ossidativo, l'autofagia dei mitocondri e l'aumento del tasso di -sinucleina [8,25].
Tra gli altri meccanismi, le anomalie nella fissione mitocondriale e nella fusione giocano un ruolo significativo nel PD. Mentre la disfunzione mitocondriale è ben nota nel PD, i ruoli della fissione mitocondriale, del Drp1 e dello squilibrio di fusione rimangono sconosciuti. Le interazioni mitocondriali irregolari con una proteina Drp1 (una proteina di fissione coinvolta nella frammentazione mitocondriale) sono responsabili della fissione mitocondriale e delle proteine disregolate associate coinvolte nel PD [8].
Una maggiore produzione di Drp1, d'altra parte, previene le disfunzioni muscolari. Inoltre, le mutazioni PINK1 sono state collegate alla PD ereditaria. La fissione mitocondriale è stata stimolata dal percorso PINK1/parkin e i mutanti associati disregolano la stabilità mitocondriale e tissutale attraverso la diminuzione della fissione mitocondriale. Mutazioni nelle proteine -sinucleina, Parkin, PINK1 e DJ1 correlano con un malfunzionamento mitocondriale neuronale nel PD [8]. Nelle cellule SH-SY5Y, il knockdown dell'equilibrio PINK1 ha causato interruzioni dell'attività mitocondriale e dell'autofagia, che sono state tutte ribaltate quando è stato reintrodotto un plasmide resistente all'interferenza dell'RNA (RNAi) per PINK1. Inoltre, i cambiamenti morfologici mitocondriali sono causati dalle mutazioni PINK1 e dai promotori della fusione mitocondriale, dalla mitofusina 2 (Opa1) e dalla fusione 1 (Mfn2) [8]. LRRK2, EIF4G1, VPS35 e PARK7 sono altri fattori genetici che svolgono ruoli critici nel PD. Le mutazioni missenso A30P, E46K e A53T nella -sinucleina aumentano la propensione della proteina -sinucleina a costruire fogli, che si combinano e formano LB. Diversi casi di questo gene mutante sono stati trovati in vari casi ereditari di PD [26]. Inoltre, altri fattori che predispongono una persona al PD includono tossine e carenza di ferro nei pasti [26].
Nrf2 è un modulatore cruciale dei geni disintossicanti che aiutano il corpo a resistere allo stress ossidativo [15]. Sorprendentemente, una nuova ricerca suggerisce che la produzione di polo-like chinasi 2 (PLK2) promuove la segnalazione antiossidante fosforilando la glicogeno sintasi chinasi 3 (GSK-3), aumentando il trasferimento nucleare di Nrf2, attivando così gli elementi di risposta antiossidante (ARE) . Questo PLK2 potrebbe svolgere un ruolo essenziale nella modulazione della funzione mitocondriale [15].
La levodopa è uno dei farmaci primari usati nel PD, che funziona per fornire la dopamina come suo precursore metabolico [31]. Oltre alla levodopa e ad altre terapie convenzionali, è aumentata anche l'attenzione sui prodotti naturali e sui metaboliti secondari [19,25,31]. I trattamenti convenzionali nel PD si basano sul meccanismo di interruzione, fornitura e stoccaggio della dopamina nei neuroni [31]. Negli ultimi anni, i metaboliti secondari vegetali sono terapie alternative critiche nella lotta alle malattie neurodegenerative, con particolare attenzione al PD.
3. Metaboliti secondari vegetali e mitocondri
Come accennato in precedenza, i metaboliti secondari vegetali hanno proprietà diverse per quanto riguarda il controllo e il trattamento di varie malattie neurologiche [19]. L'uso di metaboliti secondari potrebbe interferire con i meccanismi che modulano le disfunzioni delle cellule nervose [13]. Dal punto di vista meccanicistico, questi metaboliti hanno mostrato vari effetti antiossidanti, antinfiammatori e antiapoptotici interconnessi ad eventi mitocondriali nel controllo e nella prevenzione delle malattie neurodegenerative [26]. Esiste anche una relazione significativa tra il consumo di questi metaboliti e il miglioramento delle malattie neurodegenerative mirando ai mitocondri [21].
Gli sforzi per proteggere i mitocondri e prevenire il rischio di apoptosi e stress ossidativo sono influenzati dai percorsi dei fitochimici correlati ai ROS [18,32] (Figura 1). I metaboliti secondari vegetali hanno anche effetti antiossidanti e modulatori sul complesso mitocondriale/enzimi delle cellule nervose stimolando la biosintesi mitocondriale attraverso la sirtuina1 (SIRT1), il coattivatore gamma del recettore attivato dal proliferatore del perossisoma 1-alfa (PGC-1) , fattore di trascrizione A, vie mitocondriali (TFAM) e Nrf1 che bloccano la fissione mitocondriale [33] e mantengono la stabilità della sua membrana [32].

4. Modulazione del PD da parte di sostanze fitochimiche attraverso il targeting dei mitocondri
I metaboliti secondari hanno mostrato effetti promettenti sulle malattie neurodegenerative, in particolare sul PD, prendendo di mira i mitocondri [19,25,34]. La MP è una malattia neurodegenerativa complessa caratterizzata da disfunzione mitocondriale, stress ossidativo e neuroinfiammazione. In questa linea, gli effetti di polifenoli, terpeni/terpenoidi e alcaloidi sono evidenziati sui mitocondri nel PD attraverso vari meccanismi.
4.1. Effetti dei polifenoli sui mitocondri nel PD
I polifenoli sono metaboliti secondari chiave nella modulazione dei mitocondri durante il PD. Questi metaboliti secondari hanno una struttura basata su anelli fenilici, comprese quattro categorie principali di flavonoidi, lignani, stilbeni e acidi fenolici [6,13,25]. I flavonoidi, a loro volta, hanno sette subunità che includono flavonolo, flavone, flavanone, flavanonolo, flavanolo, antocianina e isoflavone [13,35]. I polifenoli prevengono la produzione di aggregazione mal ripiegata della -sinucleina, oltre a mitigare lo stress ossidativo, i processi apoptotici e infiammatori causati dal malfunzionamento mitocondriale [21].
La bacaleina è uno dei principali flavoni attivi della radice di Scutellaria baicalensis e diminuisce il malfunzionamento mitocondriale in un esperimento in vivo e in vitro indotto da 6-idrossidopamina (6-OHDA) [36,37]. In un mitocondrio cerebrale isolato, il trattamento con baicaleina ha ridotto la generazione di ROS indotta da rotenone, la carenza di ATP e il gonfiore mitocondriale. Sorprendentemente, la baicaleina ha aumentato l'azione respiratoria mitocondriale nei mitocondri isolati. Questi risultati implicano che la baicaleina sia un vero antiossidante con targeting mitocondriale con proprietà preventive contro la neurotossicità indotta dal rotenone [38].
Il puerarin, un isoflavone ottenuto da Pueraria thomsonii, ha mostrato effetti terapeutici sui mitocondri riducendo la tossicità del modello in vitro di PD indotto dal 1-metil-4- fenilpiridinio (MPP plus ) [36]. Nelle cellule PC12 e nei neuroni primari del mesencefalo di ratto, la puerarina ha ridotto la neurotossicità mediata dall'ossido nitrico (NO) nel PD attraverso la sovraregolazione dell'enzima mitocondriale arginasi-2 per la regolazione selettiva della disfunzione mitocondriale [39]. Inoltre, è stato ampiamente dimostrato che il malfunzionamento del sistema ubiquitina-proteasoma nel neurone esacerba il PD. Puerarin ha anche prevenuto l'apoptosi nelle cellule SH-SY5Y indotte da MPP più indotte aumentando la sopravvivenza cellulare, migliorando le alterazioni morfologiche e diminuendo il tasso apoptotico modulando il sistema ubiquitina-proteasoma [40]. In un altro studio, i flavonoidi hanno indicato potenziali terapeutici sul complesso enzimatico mitocondriale I (p. es., luteolina, fisetina, robinet, miricetina, ramnetina e baicaleina) e III (p. es., ispidulina ed eupafolina) [13]. Inoltre, i flavonoidi si sono difesi contro la deplezione della dopamina e l'inizio di ROS nel PD [25].
Anche le sostanze polifenoliche come la quercetina e il resveratrolo nel vino rosso hanno mostrato potenziale terapeutico sui mitocondri inibendo l'apoptosi [13,20]. Il trattamento con resveratrolo ha anche ripristinato il potenziale di membrana mitocondriale indotto dal rotenone, la dinamica mitocondriale alterata e i mitocondri frammentati allungati nelle cellule SH-SY5Y [41]. La quercetina ha anche svolto un ruolo essenziale nella promozione della biogenesi mitocondriale [42]. Nelle cellule SH-SY5Y esposte a MPP plus o lipopolisaccaridi (LPS), il pretrattamento con quercetina ha ridotto sostanzialmente i danni mitocondriali. La tirosina idrossilasi e le proteine di controllo mitocondriale erano entrambe sovraregolate dalla quercetina [43]. Come descritto in precedenza, il PD è causato da un malfunzionamento mitocondriale e da una scarsa mitofagia. Nelle 6-cellule PC12 trattate con OHDA, la somministrazione di quercetina ha migliorato il controllo della qualità mitocondriale, ha ridotto lo stress ossidativo e ha aumentato i livelli dei marcatori mitofagici. Inoltre, nei ratti con PD, la quercetina ha alleviato la progressione indotta da 6-OHDA di anomalie motorie simili al PD, ha ridotto la morte neuronale e ha ridotto la disfunzione mitocondriale [44]. Ulteriori ricerche hanno suggerito che si presumeva che l'analisi della quercetina riparasse le anomalie dell'ETC mitocondriale e sovraregolata. Questa attività è alla base della neuroprotezione mostrata nel parkinsonismo causato dalla neurotossina mitocondriale [45]. L'iperoside, una quercetina 3-o-galattoside, è un glicoside flavonolico che ha ridotto la segnalazione apoptotica mitocondriale nelle cellule PC12 in un esperimento in vitro [46].
La silibinina, flavonolignani estratti da Silybum marianum, ha mostrato ruoli modulatori sui potenziali di membrana mitocondriale (MMP) in un esperimento in vivo su un modello PD indotto da MPTP nei topi [47]. Il meccanismo neuroprotettivo della silibinina include una diminuzione del danno mitocondriale e il rafforzamento del sistema di difesa ossidativa. La protezione del nervo dopaminergico si ottiene stimolando la mitofagia, che rimuove le conseguenze dannose dei mitocondri danneggiati. Questi dati hanno implicato che la silibinina ha il potenziale per essere ulteriormente esplorata come opzione di trattamento per PD [48]. In un altro studio, la silibinina ha ridotto significativamente il danno motorio e la degenerazione neuronale dopaminergica indotta da MPTP. I risultati suggeriscono che la silibinina ha tali benefici nei modelli di MP indotti da MPTP ottenuti attraverso l'aumento della stabilità del potenziale della membrana mitocondriale [49]. Un altro membro della famiglia dei lignani, la schisandrina, ha ridotto i livelli di ROS, ridotto l'impatto di Ca2 plus e recuperato le capacità di permeabilità della membrana mitocondriale [25].
La naringenina, un flavanone, ha mostrato un effetto regolatorio nei neuroni e ha alleviato la funzione dei mitocondri. Questo effetto è stato esercitato aumentando l'MMP e riducendo i ROS influenzando il percorso Nrf2/ARE in un esperimento in vitro sui neuroni cerebrali dei ratti Sprague Dawley [50]. Inoltre, la naringenina ha inibito la bioenergetica correlata ai mitocondri e le disfunzioni redox causate dal metilgliossale nelle cellule SH-SY5Y del neuroblastoma umano attraverso le vie Nrf2/GSH [51]. La naringenina, una naringenina glicosilata, ha dimostrato di difendersi dal PD in modelli animali. Nello striato e nella substantia nigra pars compacta (SNpc) dei ratti, la naringina ha ridotto la tossicità dopaminergica indotta dal rotenone. La naringina subcellulare ha ridotto la riduzione indotta dal rotenone della funzione mitocondriale, della stabilità e della bioenergetica nell'SNpc degli animali, attraverso un percorso mediato da Nrf2-[52].
L'isoliquiritigenina è un flflavonoide del calcone ottenuto da Glycyrrhizae uralensis. Il pretrattamento con isoliquiritigenina ha inibito completamente la produzione di ROS così come la dissipazione di MMP e la presenza del citocromo c nel citoplasma [53]. Gli induttori della via Nrf2/ARE, come l'isoliquiritigenina dalla liquirizia, hanno mostrato la potenziale conservazione della funzione mitocondriale nello stress ossidativo e nei modelli di malattie neurodegenerative e hanno anche fornito una strategia unica per prevenire e trattare i disturbi neurodegenerativi legati all'invecchiamento, in particolare PD [23] .

Gli acidi fenolici, un sottoinsieme di fenoli, tra cui l'acido ellagico e l'acido ferulico, hanno colpito i mitocondri e quindi li hanno protetti dalle vie correlate ai ROS [32]. L'aldeide protocatechuica è un altro acido fenolico ottenuto dalla radice di Salvia miltiorrhiza, che ha un effetto protettivo sui mitocondri bloccando la produzione di ROS e mantenendo l'attività del complesso I nelle cellule SH-SY5Y incubate con MPP plus valutate in un esperimento in vitro [15] . In questa linea, un altro acido fenolico, l'acido caffeico, ottenuto da tè, vino, caffè, ecc., bloccava la produzione di ROS e normalizzava l'attività dei mitocondri nel modello cellulare di PD SH-SY5Y indotto da 6-OHDA [54]. Nel modello animale MPTP di PD, l'estere fenetile dell'acido caffeico ha ridotto la neurodegenerazione dopaminergica e la perdita di dopamina. Inoltre, ha ridotto la neurotossicità indotta da MPP plus in vitro e prevenuto efficacemente il citocromo c mitocondriale indotto da MPP plus e l'apoptosi. Di conseguenza, l'acido caffeico potrebbe essere utile nel ritardare o arrestare la progressione della malattia di Parkinson [55].
I principali antiossidanti contenuti nell'olio di oliva vergine sono i prodotti fenolici e, in termini di quantità, la classe dei secoiridoidi è la più abbondante nell'olio di oliva [6]. L'oleuropeina e il ligstroside sono due dei principali secoiridoidi presenti nell'olio d'oliva e possono essere prodotti contro l'idrossitirosolo e il tirosolo. L'oleuropeina ha ridotto il tasso di anione superossido nei mitocondri [56]. Nelle cellule del cervello disciolte dai topi, l'idrossitirosolo ha impedito la depolarizzazione del potenziale della membrana mitocondriale e ridotto le funzioni dei complessi mitocondriali I, II e IV. Il tirosolo ha mostrato una funzione difensiva contro MPP plus nei neuroni dopaminergici [6]. In linea con ciò, i polifenoli del tè verde e nero hanno effetti antiossidanti incredibilmente potenti di scavenging sui frammenti di membrana dei mitocondri nel cervello [18]. I polifenoli del tè potrebbero preservare i neuroni della dopamina sopprimendo drasticamente il danno correlato al DA, inibendo l'ossidazione del DA, coniugandosi con i chinoni DA, scavenging ROS e modulando le vie di segnalazione antiossidante Nrf2-Keap1 e PGC-1 [57 ]. In linea con la modulazione di Nrf2, la pinocembrina, un flavonoide nella propoli, ha fornito sicurezza mitocondriale e cellulare sopprimendo ERK1/2 e attenuando Nrf2 [58].
La curcumina, un polifenolo ottenuto dalla Curcuma longa, ha protetto la funzione mitocondriale nel PD bloccando l'attività di MPP plus e la produzione di ROS in un esperimento in vivo e in vitro [36,42,59] e prevenendo il danno della membrana mitocondriale nel PD [18,19 ,34]. Mirando al meccanismo esatto, la vanillina, un'aldeide fenolica, ha ridotto la produzione di ROS indotta dal rotenone e il malfunzionamento mitocondriale nelle cellule SH-SY5Y [54]. Come un altro composto fenolico, la luteolina, ottenuta dal seme maturo di Perilla frutescens, ha anche svolto un ruolo preventivo nella produzione di ROS e ha mantenuto l'attività dei mitocondri a un livello normale [46,60]. Un altro composto fenolico, l'epigallocatechina gallato (EGCG), un tipo di catechina ottenuta dal tè verde, ha inibito il malfunzionamento mitocondriale attraverso la stimolazione della via della proteina chinasi attivata da AMP (AMPK) [61].
L'esperidina, un glicoside flavonoide spesso osservato negli agrumi, ha mostrato un effetto protettivo sui mitocondri modulando il complesso mitocondriale I, IV e V in un esperimento in vivo sui topi [62]. Le strutture chimiche dei flavonoidi/composti fenolici sono fornite nella Figura 2.
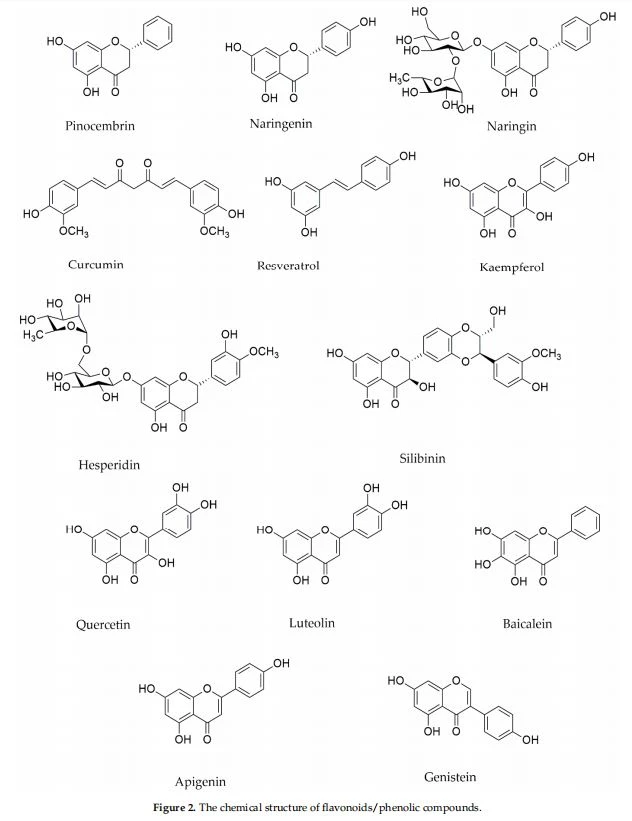
Pertanto, diversi studi hanno affermato che i flavonoidi e i composti fenolici potrebbero essere utili nella prevenzione/trattamento del PD prendendo di mira i mitocondri e i relativi mediatori apoptotici/ossidativi, tra cui MMP, ROS, Nrf2/ARE, NO, JNK, p38MAPK, Bcl{{2} }/Bax ratio, PI3K/Akt, fattore nucleare Kappa-B (NF-κB), PGC-1 e attività dei complessi I, II e IV.
4.2. Alcaloidi e mitocondri nel PD
Gli alcaloidi sono sostanze fitochimiche primarie con atomi di azoto, solitamente come parte di un sistema ciclico o in combinazione. Questa classe di sostanze fitochimiche influenza la vita sociale, lo stato economico e gli aspetti sanitari della vita umana in varie malattie, in particolare PD [63,64]. La nicotina è un alcaloide naturale che si trova nelle radici e nelle foglie di Nicotiana tabacum. È inoltre presente prevalentemente in quantità minori di vari tipi della famiglia delle Solanacee, come patate, pomodori, melanzane e peperoncini. La nicotina inibisce l'ETC dall'NADH al complesso I, blocca l'azione della NADH-ubichinone reduttasi, determinando una riduzione misurabile dell'assunzione di ossigeno da parte dei mitocondri. Sopprimendo il complesso I, la nicotina ha portato a una minore deplezione di elettroni e, di conseguenza, a una minore generazione di ROS [65]. In un altro studio, la nicotina ha interferito con la via apoptotica mitocondriale e ha protetto i neuroni dall'apoptosi causata dallo stress ossidativo [32]. Come fornito da Xie et al., la nicotina è stata collegata a una minore possibilità di contrarre la malattia di Parkinson. La nicotina ha soppresso MPP plus e gonfiore mitocondriale ad alta ampiezza indotto dal calcio e anche rilascio di citocromo c da mitocondri intatti nelle cellule SH-SY5Y. I loro risultati indicano che la nicotina ha mostrato un impatto neuroprotettivo indipendente dal recettore durante il PD attenuando MPP plus, mitocondriale indotto dal calcio e citocromo c [66]. Un altro rapporto ha dimostrato che la dinamica mitocondriale mediata dalla nicotina e l'impatto sull'affiliazione mitocondriale dai microtubuli, aumenta notevolmente il raggruppamento del recettore IP3 e modula la comunicazione mitocondriale-endoplasmatico, nonché aumenta la biogenesi mitocondriale nei neuroni ippocampali in coltura [67]. La nicotina ha anche mostrato impatti mitocondriali a piccole dosi in vivo e in vitro, mantenendo la funzione mitocondriale nel SNC di ratto [68]. Secondo questi risultati, la nicotina ha inibito l'apoptosi degli astrociti2-indotta da H2O, attraverso la via mitocondriale, stimolando 7 recettori nicotinici dell'acetilcolina (7-nAChR) e gli astrociti che sono stati collegati a risposte immunologiche sono associati al PD. Inoltre, considerando la capacità dei 7-nAChR espressi negli astrociti, potrebbe essere un potenziale approccio terapeutico per le malattie neurodegenerative [69].
La caffeina (1,3,{2}}trimetil xantina) è un alcaloide naturale che si trova nelle piante di caffè, tè e cacao [70]. La caffeina può bloccare la produzione di ROS e migliorare l'attività dei mitocondri. Aumenta anche la formazione mitocondriale stimolando Nrf2-keap1 e PGC-1 implicati nella biogenesi mitocondriale, oltre ad avere meccanismi antiossidanti e antinfiammatori interconnessi. Inoltre, la caffeina ripristina i geni di trascrizione impegnati in varie attività come la morte cellulare, il controllo del ciclo cellulare, lo stress ossidativo e l'espressione di geni correlati alla funzione mitocondriale [70].
La berberina è un alcaloide isochinolinico presente in varie piante medicinali, in particolare quelle appartenenti al genere Berberis [71]. In modelli animali di PD, è stato dimostrato che la berberina ha proprietà neuroprotettive. A tal fine, i ricercatori hanno studiato la localizzazione subcellulare e la permeabilità della barriera emato-encefalica (BBB) della berberina in un modello cellulare di PD e un modello di PD di pesce zebra utilizzando un derivato della berberina marcato in modo fluorescente [72,73]. Nel loro studio, il derivato della berberina ha mostrato la sua azione anti-PD passando facilmente attraverso il BBB. Si è anche accumulato rapidamente e con precisione nei mitocondri delle cellule PC12, secondo un'analisi di localizzazione subcellulare. Inoltre, protegge dalla morte cellulare indotta da 6-OHDA, allevia il comportamento simile al PD indotto da MPTP e aumenta la perdita di neuroni dopaminergici nel cervello del pesce zebra affetto da PD [72].
L'Embelin è un prodotto vegetale naturale scoperto nei frutti di Lysimachia punctata (Primulaceae) ed Embelia ribes Burm (Myrsinaceae) [74]. I risultati dimostrano che iniziano le cellule dopaminergiche N27 preservate dallo stress ossidativo indotto da MPP e dall'apoptosi. Le cellule trattate con Embelin avevano livelli più elevati di pAMPK, SIRT1 e PGC1, indicando una migliore biogenesi mitocondriale. Inoltre, l'embelin ha fornito protezione in vivo contro le diminuzioni indotte da MPTP nella dopamina striatale e nel percorso di biogenesi mitocondriale [75].
L'isorincofillina è un significativo alcaloide tetraciclico ossindolo identificato dal rimedio erboristico cinese Uncaria rhynchophylla, usato da generazioni nell'Asia orientale per alleviare i disturbi neurologici [76]. La ricerca ha scoperto che l'isorincofillina ha ridotto sostanzialmente la morte cellulare apoptotica indotta da MPP più nelle cellule PC12 e ha ridotto in modo massiccio le risposte allo stress del reticolo endoplasmatico indotto da MPP più, entrambi implicati nella morte neuronale dopaminergica nel PD [77]. In un altro studio, è stato dimostrato che un alcaloide leonina unico, ottenuto da Herba Leonuri (una medicina tradizionale cinese) ha un effetto protettivo sui mitocondri nel PD e blocca lo stress ossidativo [78].
Gli studi di cui sopra hanno implicato la possibile applicazione degli alcaloidi nel prendere di mira i mitocondri nella prevenzione e nel trattamento del morbo di Parkinson. Di conseguenza, gli alcaloidi modulano diversi segnali/mediatori, inclusi ROS, Nrf2-keap1, PGC-1 , pAMPK, 7-nAChRs e SIRT1.
4.3. Terpeni e mitocondri nel PD
I terpeni sono una classe di metaboliti secondari vegetali che possiedono effetti neuroprotettivi regolando le vie associate ai mitocondri. I terpeni/terpenoidi sono costituiti da unità isopreniche o strutture modificate. Sulla base dei numeri di unità dell'isoprene nella loro struttura molecolare, i terpeni/terpenoidi sono classificati in monoterpeni, sesquiterpeni, diterpeni, triterpeni e tetraterpeni [79].
I carotenoidi sono abbondanti nei pigmenti fotosintetici delle piante e la loro composizione molecolare è costituita dai tetraterpeni (un 8-polimero isoprenico). Il licopene, un carotenoide naturale, ha migliorato la capacità della membrana strutturale mitocondriale e i rapporti di ATP mentre inibiva Bax e il declino affiliato dei livelli di Bcl-2 ha fornito protezione contro l'infiammazione e lo stress ossidativo nelle cellule neuronali [32]. In un altro studio, il trattamento con licopene ha ridotto la depolarizzazione mitocondriale e il rilascio di citocromo c nei neuroni, suggerendo che l'integrità della membrana mitocondriale è stata preservata [80]. Inoltre, il licopene ha ridotto la generazione di ROS mitocondriale indotta da MPP plus e le alterazioni morfologiche mitocondriali. Nel loro studio, il licopene ha soppresso l'MPP più l'apertura indotta del poro di transizione della permeabilità mitocondriale (MPT). I benefici preventivi del licopene nei confronti della citotossicità indotta da MPP più potrebbero essere dovuti al suo coinvolgimento nel potenziamento dell'attività mitocondriale. Questi risultati implicano che il licopene potrebbe essere un utile approccio terapeutico per il PD [81].
Kaur et al. ha anche riferito che il licopene ha inibito il rilascio del citocromo c dai mitocondri. I risultati supportano il potenziale terapeutico degli integratori di licopene nel PD indotto da rotenone, che ha mostrato effetti benefici nelle malattie neurodegenerative modulando lo stress ossidativo [82]. L'astaxantina, un carotenoide chetostruttura nella microalga Haematococcus Pluvialis, ha prevenuto il malfunzionamento mitocondriale e modulato la produzione di ROS in un esperimento in vivo e in vitro [83]. L'estere di astaxantina acilato con acido docosaesaenoico ha sostanzialmente inibito la progressione del PD in un modello di topo indotto da MPTP. Ha mostrato un ruolo potenziale nella regolazione della morte dei neuroni dopaminergici nel cervello attraverso la via mediata dai mitocondri, così come i percorsi JNK e p38MAPK [84].
Nelle cellule SH-SY5Y, un triterpenoide pentaciclico chiamato acido asiatico difende dai danni cellulari e dal malfunzionamento mitocondriale causati da H2O2 o rotenone. L'aumento indotto dal rotenone nel canale anionico voltaggio-dipendente e nella dispersione del potenziale della membrana mitocondriale è stato bloccato dall'acido asiatico. Inoltre, per la stabilità della membrana dei mitocondri, l'acido asiatico ha ridotto la produzione di Bax e aumentato il livello di Bcl-xL [85]. In un modello cellulare indotto dal rotenone, l'acido asiatico ha salvato i mitocondri contro il danno ossidativo e l'apoptosi. L'acido asiatico ha anche aumentato l'MMP in un modello di mitocondri isolato, preservando l'integrità della membrana e la generazione di ATP. I risultati mostrano che i mitocondri sono essenziali nel PD e un acido asiatico è un'opzione promettente per la prevenzione e il trattamento del PD [86].
L'andrographolide, un lattone diterpenoide, ha mostrato un effetto protettivo sui mitocondri bloccando la produzione di ROS e modulando il malfunzionamento mitocondriale bilanciando il livello di ATP in modelli sia in vivo che in vitro. Andrographolide ha anche migliorato la delezione dei mitocondri depolarizzati attraverso un percorso parkin-dipendente [87]. Nei topi esposti a MPTP, il trattamento con andrografolide ha alleviato i disturbi comportamentali e ha ridotto la perdita di neuroni dopaminergici, nonché la morte cellulare indotta da rotenone in vitro. Durante la malattia di Parkinson, l'andrografolide ha impedito un'eccessiva fissione mitocondriale e il danno neuronale [88].
L'acido carnosico, un diterpene nel rosmarino, ha stimolato la proteina di fusione dei mitocondri, la mitofusina 1 e 2 (MFN1 e MFN2) e l'atrofia ottica 1 (OPA1). Ha anche bloccato la proteina 1 (DRP1) correlata alla proteina di fissione. Inoltre, la parkina ha attivato la via IKK/NF-κB e ha aumentato la produzione di proteine OPA1 da parte dell'acido carnosico [89]. In questa linea, l'acido carnosico ha ridotto l'impatto negativo del modello paraquat di PD sull'attività mitocondriale, riducendo la generazione di ROS/specie di azoto reattivo (RNS). Di conseguenza, l'acido carnosico ha stimolato Nrf2 nelle cellule SH-SY5Y modulando la via PI3K/Akt, risultando in enzimi antiossidanti più elevati [90]. La MMP è stata disturbata, la proteina del canale anionico voltaggio-dipendente 1 (VDAC1) è stata bloccata e il citocromo c citosolico è stato aumentato nelle cellule SH-SY5Y dopo il trattamento con 6-OHDA; tuttavia, l'acido carnosico ha impedito tali effetti. Stimolando la mitofagia PINK1/parkin-mediata, l'acido carnosico sembra mitigare la neurotossicità di 6-OHDA [91]. Di conseguenza, l'acido carnosico potrebbe essere considerato un farmaco neuroprotettivo per il trattamento del morbo di Parkinson attraverso vie associate ai mitocondri.
È stato dimostrato che gli acidi boswellici, un gruppo di triterpeni pentaciclici, del genere Boswellia, riducono il malfunzionamento mitocondriale indotto dal rotenone inibendo l'interleuchina (IL)-6/trasduttore di segnale e attivatore della trascrizione-3 (STAT3 vie di segnalazione )/NF-κB [92]. L'acido del tormento è un triterpene presente nelle piante medicinali, tra cui Rosa rugosa e Potentilla Chinensis che ha soppresso in modo significativo l'aggregazione intracellulare di ROS e il rapporto Bax/Bcl-2 indotto da MPP plus nelle cellule SH-SY5Y. Questo effetto è stato esercitato principalmente attraverso la stimolazione della via di segnalazione PI3K/Akt/GSK-3. I loro risultati mostrano che l'acido tormentoso potrebbe essere un possibile contendente per ulteriori ricerche precliniche sulla prevenzione e il trattamento del PD [93].
Catalpol, un glucoside iridoide estratto dalla radice di Rehmannia glutinosa Libosch, ha ridotto il malfunzionamento mitocondriale diminuendo la produzione di ATP e aumentando il livello di MPP plus. Ha anche ridotto l'apporto di calcio delle cellule neuronali, l'accumulo di ROS e i pori MPT [94,95].
Tra gli altri terpenoidi, il ginsenosidi-Rg1, un triterpenoide con un ruolo di primo piano nell'efficacia del ginseng, può avere un effetto preventivo sullo stress ossidativo contro il malfunzionamento mitocondriale in un esperimento in vivo [96,97]. Il ginseng, la radice della specie Panax (Araliaceae), è una medicina erboristica tradizionale cinese e una medicina naturale comune e molto utilizzata nei tempi contemporanei. I ginsenosidi sono i principali componenti farmacologicamente attivi nel ginseng e sono associati alla maggior parte delle azioni del ginseng [98]. È stato dimostrato che i ginsenosidi-Rg1 (G-Rg1) possiedono benefici terapeutici con una minore tossicità in vitro e in vivo. Aiuta anche con vari disturbi neurologici, in particolare malattie neurodegenerative progressive come PD [99]. Tali effetti dei ginsenosidi-Rg1 includono il miglioramento dei ruoli antinfiammatori, antiossidanti e anti-apoptotici. Ha anche mostrato il potenziale per sopprimere l'eccitotossicità e l'eccessivo afflusso di Ca2 più nei neuroni, mantenere le concentrazioni di ATP cellulare e proteggere l'integrità strutturale neuronale. L'eccesso di perossido di idrogeno e altri ROS prodotti da concentrazioni di ferro altamente reattive possono provocare un malfunzionamento mitocondriale e un aumento del metabolismo della dopamina. I ginsenosidi-Rg1(G-Rg1) hanno ridotto il numero di cellule coloranti di ferro nel SN dei topi trattati con MPTP [96]. È stato anche scoperto che il ginsenoside Rb1 (a 10 M) ha notevolmente migliorato la sopravvivenza cellulare rispetto ai controlli recuperando l'MMP e riducendo l'afflusso eccessivo di Ca2 più nei mitocondri, con conseguente aumento dell'energia prodotta dai mitocondri nei neuroni dopaminergici primari del topo in coltura. Inoltre, è stato scoperto che il ginsenoside Re ripara e compensa particolari carenze del complesso mitocondriale IV nelle linee cellulari dopaminergiche PINK1-null aumentando i livelli di espressione degli accompagnatori LRPPRC, Hsp90 e Hsp60 attraverso il ripristino della segnalazione ottimale di NO. Il notoginsenoside R2 (NGR2), un notoginsenoside isolato da P. notoginseng, ha ridotto la morte mitocondriale nelle cellule SH-SY5Y attraverso le vie MEK1/2–ERK1/2 e sopprimendo lo stress ossidativo indotto da 6-OHDA. L'estratto acquoso della radice di P. ginseng ha anche inibito la morte cellulare nelle cellule SH-SY5Y trattate con MPP plus riducendo la sintesi eccessiva di ROS e inibendo la via apoptotica dipendente dai mitocondri, come indicato da un rapporto Bax/Bcl-2 ridotto, citocromo c release e attività caspase-3 [100]. Le strutture chimiche degli alcaloidi/terpenoidi sono fornite nella Figura 3.

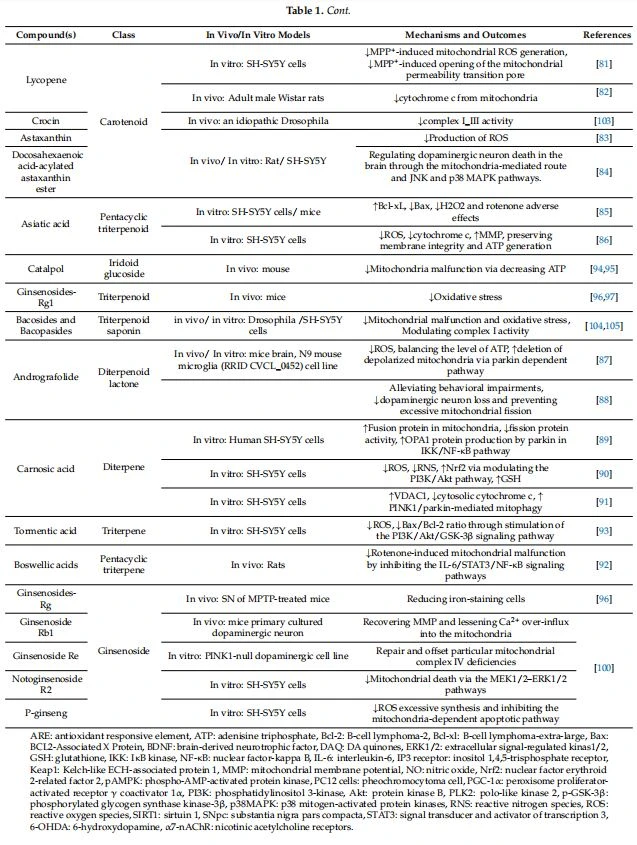
Complessivamente, i terpeni/terpenoidi hanno mostrato effetti anti-PD di buon auspicio prendendo di mira i mitocondri, sopprimendo così l'attività complessa I-III, PINK1/parkin, ROS, Bax, JNK/p38MAPK, IKK/NF-κB, VDAC1, PI3K/Akt/GSK{{ 6}} e IL-6/STAT3/NF-κB. La tabella 1 mostra gli effetti modulatori dei metaboliti secondari vegetali sui mitocondri e sui mediatori interconnessi verso la prevenzione/trattamento del PD.


5. Conclusioni
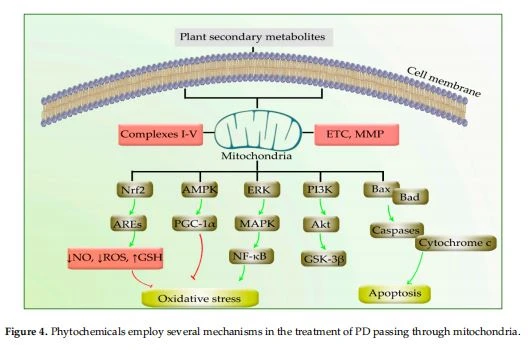
I mitocondri sono bersagli promettenti nella lotta contro diverse malattie neurodegenerative, in particolare il PD. Poiché i complessi/enzimi dei mitocondri e i mediatori ossidativi/apoptotici interconnessi svolgono ruoli critici nel PD, fornire terapie multi-bersaglio contro questa malattia potrebbe aprire nuove strade verso la ricerca di trattamenti promettenti. I metaboliti secondari vegetali sono agenti multi-bersaglio nella lotta alla neurodegenerazione, impiegando effetti antinfiammatori, anti-apoptotici e antiossidanti. Il potenziale dei fitochimici in un targeting simultaneo dei mitocondri e dei mediatori interconnessi potrebbe aprire la strada nel trattamento del PD. In questa linea, l'attività dei complessi IV, MIMP. ROSA1/parkin, ROS. NO Bc-2/rapporto Bax, PGC-1 ,pAMPK, -nAChRs e SIRT1, Nrf2/ARE, INK/p38MAPK, IKK/NF-KB, PI3K/Akt/GSK-3 , VDACl e STAT3/NF-kB sono modulati da sostanze fitochimiche che passano attraverso i mitocondri verso il trattamento/prevenzione del PD (Figura 4).
Nonostante la loro efficacia, i fitochimici soffrono di scarsa biodisponibilità, instabilità/solubilità/selettività, rapido metabolismo e clearance che limitano la loro concentrazione plasmatica e le applicazioni terapeutiche nel PD. Quindi, lo studio di sistemi di rilascio appropriati (ad es. nanoparticelle, micelle, liposomi e nanoparticelle lipidiche solide) per i fitochimici potrebbe contrastare i limiti nelle loro applicazioni nella lotta contro la malattia di Parkinson aumentando l'assorbimento cellulare, la biodisponibilità, l'efficacia e la specificità delle piante neuroprotettive metaboliti secondari derivati [79].
Figura 4. I fitochimici impiegano diversi meccanismi nel trattamento del PD che passa attraverso i mitocondri. Nonostante la loro efficacia, i fitochimici soffrono di scarsa biodisponibilità, instabilità/solubilità/selettività, rapido metabolismo e clearance che limitano la loro concentrazione plasmatica e le applicazioni terapeutiche nel PD. Quindi, lo studio di sistemi di rilascio appropriati (ad es. nanoparticelle, micelle, liposomi e nanoparticelle lipidiche solide) per i fitochimici potrebbe contrastare i limiti nelle loro applicazioni nella lotta alla malattia di Parkinson aumentando l'assorbimento cellulare, la biodisponibilità, l'efficacia e la specificità di neuroprotettivi derivati dalle piante metaboliti secondari [79]. Il presente studio mette in evidenza il potenziale di composti fenolici, alcaloidi, terpenoidi e sostanze fitochimiche varie nella lotta al PD che passa attraverso le vie associate ai mitocondri. Rapporti futuri dovrebbero includere ulteriori studi preclinici per rivelare il targeting critico dei mitocondri nel PD seguito da studi clinici ben controllati per valutare i fitochimici come trattamenti efficaci. Inoltre, sarebbe di grande importanza rivelare il ruolo diretto dei mitocondri e i relativi effetti benefici dei metaboliti secondari vegetali nei segni preclinici e clinici del PD. Tali relazioni evidenzieranno ulteriormente il potenziale dei fitochimici nella prevenzione, gestione e trattamento del morbo di Parkinson.


