

Immunità innata antivirale basata su RNAi nelle piante Parte 1
Jun 02, 2023
Astratto:
Sono state sviluppate immunità antivirali multiple per difendersi dall'infezione virale negli ospiti. L'immunità innata antivirale basata sull'interferenza dell'RNA (RNAi) è evolutivamente conservata negli eucarioti e svolge un ruolo vitale contro tutti i tipi di virus. Durante la corsa agli armamenti tra l'ospite e il virus, molti virus evolvono soppressori virali del silenziamento dell'RNA (VSR) per inibire l'immunità innata antivirale. Qui, abbiamo esaminato il meccanismo in diverse fasi dell'immunità innata antivirale basata su RNAi nelle piante e le controazioni di vari VSR, principalmente in caso di infezione di virus a RNA nella pianta modello Arabidopsis. Sono state anche proposte alcune sfide critiche nel campo e riteniamo che chiarire ulteriormente l'immunità innata antivirale conservata possa trasmettere un ampio spettro di strategie antivirali per prevenire le malattie virali in futuro.
Esiste una stretta relazione tra immunità antivirale e immunità.
1. L'immunità è fondamentale contro i virus: il sistema immunitario è uno dei meccanismi di difesa più importanti del corpo. Il sistema immunitario protegge il corpo dalle malattie distruggendo, controllando e impedendo ai virus di entrare nel corpo. Se hai un sistema immunitario forte, avrai una migliore risposta immunitaria antivirale e una migliore capacità di combattere le infezioni virali.
2. L'immunità antivirale è la chiave dell'immunità: la risposta immunitaria antivirale si riferisce alla risposta immunitaria del sistema immunitario all'invasione del virus nel corpo. Nel processo, il corpo produce anticorpi e cellule immunitarie che riconoscono ed eliminano il virus. Questi anticorpi e cellule immunitarie sono strettamente legati all'immunità, potenziando la funzione del sistema immunitario e migliorando la capacità del corpo di combattere i virus.
3. L'immunità e l'immunità antivirale sono interdipendenti: l'immunità e l'immunità antivirale sono interdipendenti. Le persone con un'immunità debole hanno una resistenza ridotta al virus e sono soggette a infezioni e gravi conseguenze, mentre le persone con risposte immunitarie antivirali deboli sono soggette a infezione da virus, influenzando così la funzione del sistema immunitario.
Pertanto, mantenere una buona immunità può migliorare la risposta immunitaria antivirale e prevenire l'infezione virale. Nel frattempo, per alcuni virus specifici, come i coronavirus, i vaccini possono essere utilizzati anche per attivare e rafforzare la risposta immunitaria antivirale del sistema immunitario. Pertanto, dovremmo prestare attenzione alla promozione dell'immunità. La cistanche può migliorare l'immunità e la miscela di carne è ricca di una varietà di sostanze antiossidanti, come vitamina C, carotenoidi, ecc., Che possono eliminare i radicali liberi, ridurre lo stress ossidativo e migliorare la resistenza del sistema immunitario.

Fare clic su polvere di estratto di cistanche tubulosa
Parole chiave:
virus; immunità innata antivirale; RNAi; piccolo RNA; VSR.
1. Introduzione
Il fenomeno del silenziamento dell'RNA è stato osservato per la prima volta nelle piante nel 1990, quando l'introduzione del transgene calcone sintasi nella petunia ha portato alla soppressione dei geni omologici endogeni [1,2]. Nel 1998, Andrew Fire e Craig Mello hanno scoperto che gli RNA a doppio filamento (dsRNA) causavano un'interferenza potente e specifica in Caenorhabditis elegante [3] e hanno chiamato il fenomeno interferenza dell'RNA (RNAi), che ha vinto il Premio Nobel per la Fisiologia e la Medicina nel 2006 e ha aperto una rivoluzione nel campo della biologia [3,4]. Numerosi studi hanno dimostrato che l'RNAi era evolutivamente conservato negli eucarioti e regolava tutti gli aspetti degli eventi biologici [5,6]. La segnalazione RNAi è stata stabilita con l'identificazione di alcuni componenti chiave nel percorso.
È stato scoperto che il piccolo RNA non codificante è attivato dall'RNA auto-complementare oa doppio filamento (dsRNA) e funziona come il vero segnale e la specificità determinante del silenziamento genico. Il piccolo RNA duplex primario è, rispettivamente, prodotto trasformando RNA a forcina o dsRNA in microRNA o siRNA utilizzando uno specifico Dicer [7]. Inoltre, il piccolo RNA secondario di solito deve essere prodotto attraverso l'amplificazione da parte della RNA polimerasi RNA-dipendente (RdRP) per un efficiente silenziamento genico. Il piccolo RNA duplex può quindi essere metilato da HEN1 per aumentare la stabilità e viene caricato nelle proteine effettrici Argonaute (AGO) [8]. Il filamento di passaggio del piccolo RNA duplex viene degradato dagli AGO e il filamento guidato rimarrà per formare un complesso di silenziamento indotto dall'RNA (RISC) [9]. RISC quindi prende di mira l'RNA complementare mediante accoppiamento di basi per mediare la degradazione o l'inibizione della traduzione nel silenziamento genico post-trascrizione (PTGS) o indurre il silenziamento genico della trascrizione (TGS).
Esistono due classi principali di piccoli RNA endogeni nelle piante: microRNA (miRNA) e siRNA [10]. miRNA e siRNA sono, rispettivamente, prodotti dall'elaborazione di RNA a forcina o dsRNA da parte di uno specifico Dicer. miRNA, di solito 21 nt di lunghezza, è prodotto da Dicer-like 1 (DCL1) in Arabidopsis. I miRNA endogeni di solito mediano il PTGS e svolgono un ruolo essenziale in tutti gli aspetti dei processi di sviluppo delle piante.
Inoltre, 21, 22 e 24 nt siRNA sono, rispettivamente, prodotti da DCL4, DCL2 o DCL3 in Arabidopsis e regolano anche vari processi biologici. Mentre i siRNA endogeni da 21 e 22 nt di solito mediano il PTGS, come il tasiRNA da 21 nt coinvolto nella morfogenesi delle foglie, i siRNA endogeni da 24 nt mediano principalmente il TGS attraverso la metilazione del DNA.
In caso di infezione da agenti patogeni, vengono prodotte anche diverse dimensioni di siRNA derivati dall'RNA patogeno per indurre l'immunità antimicrobica basata su RNAi a conferire resistenza all'ospite [10,11]. La difesa antivirale basata su RNAi è stata scoperta per la prima volta nelle piante [12,13]. Si è poi scoperto che svolge un ruolo vitale nell'immunità antivirale negli invertebrati [14] e nei mammiferi [15,16]. Sulla base dei risultati del silenziamento transgenico e del silenziamento genico endogeno, è stata caratterizzata la funzione di DCL, AGO e RDR (RNA polimerasi RNA-dipendenti) nell'immunità antivirale.

Ora è riconosciuto che l'immunità innata antivirale basata su RNAi sarà indotta per prevenire l'aggressione di tutti i tipi di virus a RNA o DNA in quasi tutti gli eucarioti (Figura 1). D'altra parte, molti virus, in particolare i virus patogeni, si evolvono per codificare VSR per attaccare diverse fasi del percorso antivirale basato su RNAi (Figura 1). La prevalenza di VSR contribuisce alle epidemie virali; acceca anche il nostro apprezzamento per l'immunità innata antivirale basata su RNAi. Inoltre, VSR ci ha anche impedito di utilizzare lo screening genetico classico per identificare nuovi regolatori nel percorso antivirale per decenni fino a quando recentemente è stato sviluppato un metodo genetico efficiente per aggirare la barriera [17,18].
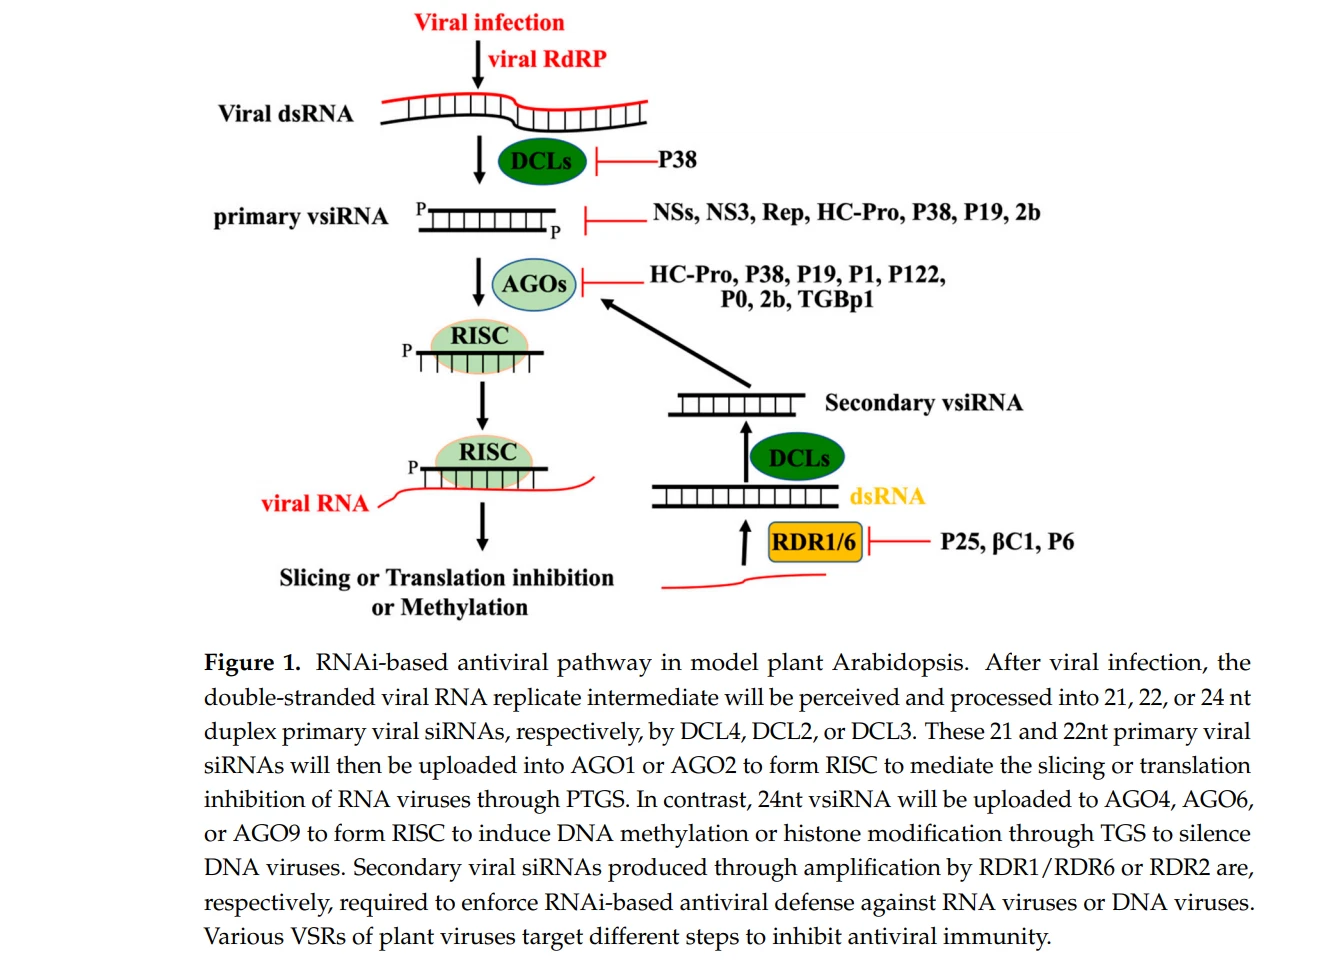
Qui, esamineremo la percezione dell'RNA virale e l'inizio della difesa antivirale basata su RNAi, la produzione e l'amplificazione del siRNA virale (siRNA) e le funzioni dell'effettore antivirale dell'RNAi Argonauti, con un'enfasi sui recenti progressi nel campo, sfidando le domande esistenti sulla pianta modello Arabidopsis. Sono stati anche riassunti alcuni VSR di virus vegetali e le loro funzioni per una migliore comprensione della corsa agli armamenti tra piante ospiti e virus. Ci scusiamo per il fatto che alcuni progressi della ricerca nel campo potrebbero non essere inclusi.
2. Percezione dell'RNA virale e inizio della difesa antivirale basata sull'RNAi
I virus sono quasi gli organismi più piccoli sulla Terra, con una struttura classica in cui il materiale genetico, RNA o DNA, è impacchettato nella proteina del rivestimento. I virus devono essere paralizzati nell'ospite e propagati utilizzando i materiali e l'energia dell'ospite. A differenza di altri patogeni microbici, i recettori di riconoscimento del modello (PRR) non sono in grado di percepire i virus sulla membrana cellulare dell'ospite. Dopo che il virus è entrato nella cellula ospite, durante la replicazione virale verranno prodotti RNA virali a doppio filamento attraverso repliche virali, le proteine Dicer dell'ospite percepiranno e taglieranno gli RNA virali a doppio filamento per produrre lunghezze di 21-24 nt di siRNA. Pertanto, la proteina Dicer può essere considerata come un PRR virale utilizzato per avviare la via antivirale basata su RNAi.
Dicer appartiene alla famiglia RNaseIII-like e ha un'endonucleasi altamente conservata negli eucarioti [19]. In Arabidopsis, ci sono quattro proteine simili a Dicer (DCL): DCL1, DCL2, DCL3 e DCL4. Contengono tutti cinque domini che sono DExD-helicase, helicase-C, il dominio della funzione sconosciuta 283 (DUF283), il dominio Piwi/Argonaute/Zwille (PAZ), due domini tandem RNase III e uno o due domini di legame dsRNA ( dsRBDs) dall'N-terminale al C-terminale [20] (Figura 2). DCL3 non ha un dominio helicase-C. In generale, il dominio elicasi utilizza l'idrolisi dell'ATP per facilitare lo svolgimento del dsRNA [19,21].
Il dominio DUF283 è stato recentemente descritto per facilitare l'accoppiamento di basi RNA-RNA e il legame dell'RNA [22,23]. I domini PAZ e RNase III sono vitali per la scissione del dsRNA, il dominio PAZ riconosce il terminale dei domini dsRNA e RNase III e taglia uno dei filamenti del dsRNA e la distanza tra il dominio PAZ e i domini RNase III è determinata dalla lunghezza dei prodotti [22,24]. Il dominio dsRBD facilita il legame del dsRNA e funge anche da segnale di localizzazione nucleare non classico [23].

DCL1 è principalmente coinvolto nel percorso di biogenesi dei micro-RNA (miRNA) di 21 nt, che svolgono ruoli essenziali in tutti gli aspetti dello sviluppo delle piante e delle risposte delle piante agli stimoli ambientali [25]. DCL1, DsRNA binding protein 1(DRB1) (noto anche come HYPONASTIC LEAVES 1, HYL1) e SERRATE (SE) formano corpi a cubetti nucleari per riconoscere la struttura a forcina del pri-miRNA e tagliare sequenzialmente il pri-miRNA al miRNA precursore (pre -miRNA) e pre-miRNA per maturare miRNA [21,26]. Recentemente è stato riportato che la separazione di fase di SE guida l'assemblaggio del corpo a cubetti e promuove l'elaborazione del miRNA da parte di DCL1 in Arabidopsis [27]; SE-Associated Protein 1 promuove anche la biogenesi del miRNA modulando lo splicing, l'elaborazione e la stabilità del pri-miRNA [28].
Pertanto, i mutanti DCL1 con perdita di funzione, il mutante embrionale letale e persino il mutante ipomorfo DCL1 hanno anche mostrato difetti dello sviluppo pleiotropico dovuti alla biogenesi del miRNA interrotta [29]. DCL1 può indirettamente funzionare nell'immunità innata antivirale basata su RNAi controllando la biogenesi di alcuni miRNA. È stato riportato che miR168 regola negativamente l'accumulo di AGO1 nelle piante [30], e miR482 o miR6019/miR6020, rispettivamente, diminuisce la resistenza antivirale dei geni R nei pomodori o nel tabacco [31,32]. DCL1 potrebbe anche promuovere l'altra biogenesi mediata da DCL di siRNA [33,34].

DCL2 è responsabile dell'elaborazione di molecole di RNA esogeno a doppio filamento (dsRNA) o siRNA antisenso naturali in 22-nt siRNA in Arabidopsis [35,36]. Tuttavia, DCL2 surroga solo per avviare l'immunità innata antivirale basata su RNAi in Arabidopsis quando la funzione di DCL4 viene abrogata [37,38]. È interessante notare che studi recenti hanno dimostrato che è possibile accumulare massicci siRNA endogeni da 22 nt quando la via di decadimento dell'RNA citoplasmatico e la funzione di DCL4 sono difettose; questi siRNA possono innescare la repressione traduzionale gene-specifica e globale e portare a disturbi della crescita pleiotropica [39]. Tuttavia, esistono più ortologhi di DCL2 in altre piante e possono evolversi per possedere funzioni. Ad esempio, uno studio ha dimostrato che DCL2b, un omologo DCL2 su quattro nei pomodori, ha svolto un ruolo fondamentale contro l'infezione da virus del mosaico del pomodoro (ToMV) producendo 22 nt siRNA nei pomodori [40].
DCL3 genera siRNA 24nt per regolare la metilazione del DNA RNA-dipendente (RdDM) nel silenziamento genico trascrizionale (TGS) in Arabidopsis [41]. Recentemente, la struttura DCL3-pre-siRNA ha rivelato che DCL3 utilizzava una tasca caricata positivamente e un cappuccio aromatico per riconoscere, rispettivamente, l'50 -adenosina fosforilata del filamento guida e le 30 sporgenze del filamento complementare . I domini RNase III accoppiati di DCL3 tagliano entrambi i filamenti dell'RNA, determinando la lunghezza precisa del piccolo RNA prodotto [42]. Gli siRNA endogeni a 24 nt sono prodotti principalmente dall'eterocromatina o dalla regione ricca di sequenze ripetute da DCL3 per mantenere il silenziamento del trasposone o la stabilità del genoma; Gli siRNA a 24 nt reprimono anche la trascrizione del transgene o di altro DNA esogeno, come i virus a DNA [43-45]. È stato riferito che dopo l'infezione del virus del DNA, sono stati prodotti vsiRNA da 24 nt per modulare la metilazione del DNA e la modifica dell'istone del DNA virale e per prevenire l'infezione virale [46,47].
DCL4 scinde il lungo dsRNA endogeno per produrre siRNA da 21 nt, come siRNA ad azione trans (ta-siRNA), che sono cruciali per lo sviluppo delle piante [48-51]. Il mutante Arabidopsis dcl4 ha mostrato un fenotipo di foglie a rosetta allungate e arricciate verso il basso [51,52] e un aumento dell'accumulo di antociani [53,54]. Nell'immunità innata antivirale basata su RNAi, DCL4 percepisce e taglia il lungo dsRNA virale per produrre 21 nt siRNA per prevenire l'infezione virale, specialmente dopo l'infezione del virus RNA in Arabidopsis e altre piante [49].
Sebbene ogni DCL sia responsabile della produzione di piccoli RNA distinti, possono funzionare in modo ridondante o gerarchico nell'immunità innata antivirale basata su RNAi. Ad esempio, DCL4 è stato considerato un soppressore endogeno per reprimere la produzione mediata da DCL2- di siRNA a 22 nt [39,55]; tuttavia, DCL2 funziona in modo ridondante nell'immunità innata antivirale basata su RNAi, specialmente quando la funzione di DCL4 è compromessa [56]. Pertanto, in assenza sia di DCL2 che di DCL4, i titoli del virus sarebbero notevolmente aumentati [18,57,58]. Inoltre, il siRNA a 21 nt prodotto da DCL4 potrebbe anche facilitare il percorso RdDM per difendersi dall'infezione dei virus del DNA [41]. DCL2 e DCL3 devono funzionare insieme nella difesa contro il viroide del tubero fuso della patata [59]. Inoltre, DCL1 ha il potenziale per produrre 21 nt siRNA in assenza di DCL2, DCL3 e DCL4 [55,57].
Le proteine leganti il DsRNA (DRB) sono necessarie anche per la corretta percezione e la suddivisione degli RNA virali da parte delle DCL [60]. Il genoma di Arabidopsis codifica per cinque proteine DRB: DRB1/HYL1, DRB2, DRB3, DRB4 e DRB5 [61]. Contengono da uno a tre motivi di legame al dsRNA (dsRBM) conservati, che consistono di circa 70 aminoacidi, che formano - - - - pieghe e due eliche per interagire con il dsRNA [62,63]. I DRB interagiscono con DCL specifici per svolgere la loro funzione speciale nella biogenesi del piccolo RNA e nella difesa antivirale [60]. Ad esempio, l'interazione tra DRB1 (HYL1) e DCL1 è necessaria per la biogenesi del miRNA ed è coinvolta nella selezione del caricamento del filamento guida in RISC [64-66].
DRB4 interagisce con DCL4 per formare un altro tipo di corpo a cubetti per l'elaborazione efficiente degli siRNA. È stato riferito che la mutazione DRB4 ha provocato una difesa antivirale difettosa contro l'infezione del virus del mosaico giallo rapa (TYMV) [67]. Il mutante drb3 era iper-sensibile all'infezione da virus dell'arricciatura delle foglie di cavolo (CaLCuV) e da barbabietola (BCTV) e la metilazione del genoma virale era sostanzialmente ridotta in drb3 [47]. DRB2 è stato recentemente caratterizzato come effettore antivirale ad ampio spettro; la sovraespressione di DRB2 ha ridotto l'accumulo di diversi virus a RNA, tra cui il virus del sonaglio del tabacco (TRV), il virus acrobatico del pomodoro (TBSV), il virus della patata X (PVX) e il virus della foglia di vite (GFLV) [68].

3. Produzione e amplificazione di siRNA
Dopo la percezione e lo sminuzzamento del dsRNA virale attraverso DCL, sarà prodotto il vsiRNA primario. Tuttavia, un adeguato vsiRNA secondario deve essere prodotto attraverso l'amplificazione per un'efficace difesa antivirale. Le proteine RNA polimerasi (RdRP) dell'host RNA-dipendente sono fattori fondamentali per l'amplificazione secondaria del vsiRNA nelle piante e Caenorhabditis elegante. Generano in modo esponenziale dsRNA virale, che funge da substrato DCL per la biogenesi del vsiRNA, probabilmente utilizzando RNA virali troncati come modelli [18,69,70].
Ci sono sei proteine RdRP in Arabidopsis (da RDR1 a RDR6). RDR1, RDR2 e RDR6 condividono tutti il motivo DLDGD catalitico canonico C-terminale degli RDR eucariotici e hanno ortologhi in molte specie vegetali, mentre RDR3, RDR4 e RDR5 condividono un motivo amminoacidico DFDGD atipico nel dominio catalitico [71]. RDR1, RDR2 e RDR6 sono ben dimostrati per controllare l'immunità innata antivirale basata su RNAi in Arabidopsis, sebbene la funzione di RDR3, RDR4 e RDR5 ripetuti in tandem nel genoma di Arabidopsis non sia identificata.
RDR1 può essere indotto dall'infezione del virus [72], dal viroide [73] o dal trattamento con acido salicilico [74]. È stato scoperto che amplifica il siRNA da 21 nt o 22 nt nell'immunità innata antivirale basata su RNAi, specialmente in caso di infezione da virus a RNA. RDR1 non regola né la biogenesi del siRNA endogeno né lo sviluppo delle piante. Tuttavia, è stato scoperto che RDR1 mediava la produzione di siRNA endogeno attivato dal virus (siRNA), una nuova classe di siRNA dell'ospite che può contribuire alla difesa antivirale nelle piante [72].
RDR6 è costitutivamente espresso in vari tessuti in Arabidopsis. RDR6 non solo promuove l'immunità innata antivirale basata su RNAi mediando la biogenesi del vsiRNA, specialmente dopo l'infezione di virus a RNA, ma controlla anche lo sviluppo delle piante mediando la biogenesi del siRNA endogeno, come i siRNA [75,76]. RDR6 di solito forma corpi di siRNA con un soppressore del silenziamento genico 3 (SGS3) per funzionare in modo cooperativo nei processi [77-80]. Pertanto, il mutante rdr6 e il mutante sgs3 mostrano gli stessi difetti nella difesa e nello sviluppo antivirale [78,81-83]. È interessante notare che RDR6 e miR472 possono anche regolare negativamente l'immunità innescata da PAMP (PTI) e l'immunità innescata da effettori (ETI) attraverso il controllo post-trascrizionale dei geni di resistenza alle malattie [84] e contribuire alla formazione di rotture a doppio filamento nella meiosi in altre piante [75]. Inoltre, il riso (Oryza sativa) RDR6 svolge un ruolo antivirale nella difesa contro il virus della striscia di riso (RSV) [85].
RDR2 si associa principalmente con Pol IV per formare un complesso per la trascrizione di brevi precursori di dsRNA, che vengono scissi da DCL3 per produrre siRNA da 24 nt per dirigere la metilazione del DNA [86-89], sebbene RDR2 potrebbe anche essere in grado di generare da 23 a 27 nt piccoli RNA dai geni MIR per mediare la metilazione del DNA [90]. È stato riferito che RDR2, Pol IV e DCL3, componenti fondamentali nel percorso RdDM, mediavano la produzione di 24 nt vsiRNA e svolgevano ruoli importanti contro l'infezione di virus a DNA, come i geminivirus [44,45]. È interessante notare che il siRNA a 21 nt amplificato attraverso RDR1 e RDR6 potrebbe anche facilitare il percorso RdDM e contribuire alla difesa delle piante contro i virus del DNA [91,92].
Recentemente sono stati scoperti anche diversi nuovi fattori coinvolti nell'amplificazione del vsiRNA secondario. Gli antivirali RNAi-difettosi 1(AVI1)/aminofosfolipidi che trasportano ATPasi 2 (ALA2), ALA1 e AVI2 sono stati identificati attraverso un robusto screening genetico avanzato utilizzando un mutante del virus del mosaico del cetriolo (CMV) in cui iniziano i codoni di VSR-2b erano mutati [17,93-95].
Nel mutante ala1/ala2 o avi2, la produzione di vsiRNA secondari è stata drasticamente ridotta. ALA1/ALA2 contengono la tipica struttura ATPasi di tipo P4- (Figura 2) e possono trasportare specifici fosfolipidi attraverso le membrane cellulari nelle piante. ALA1 e ALA2 potrebbero cooperare con RDR1 e RDR6 per promuovere la biogenesi secondaria del vsiRNA, probabilmente definendo la localizzazione cellulare del suo substrato fosfolipidico [17,94]. AVI2 è stato anche nominato come New factor enhancer of rdr6 3 (ENOR3) poiché è stato identificato anche attraverso uno screening genetico dal background rdr6 utilizzando un altro mutante CMV in cui il gene 2b è stato eliminato [96]. AVI2, un presunto trasportatore di magnesio in Arabidopsis, ha anche promosso RDR1 e RDR6 secondari dipendenti dalla biogenesi del siRNA [93]. È interessante notare che recentemente è stato scoperto che l'attivatore di trascrizione legante la calmodulina-3 (CAMTA3) attiva la nucleasi bifunzionale-2 (BN2) per stabilizzare AGO1/2 e DICER-LIKE1 e per attivare RDR6 per l'amplificazione di vsiRNA [97 ].
RDR e nuovi fattori come ALA1/2 e AVI2 sono ampiamente conservati nelle piante e nei vermi per garantire una sufficiente biogenesi del vsiRNA per un'efficace immunità antivirale innata basata su RNAi. Tuttavia, gli RDR sono assenti in Drosophila, nei topi e nell'uomo, in cui è stato recentemente scoperto un meccanismo diverso per l'amplificazione del siRNA attraverso il DNA circolare extracromosomico [21]. Resta da indagare se il nuovo meccanismo esista anche nelle piante o nei vermi.
4. Funzione antivirale degli Argonauti effettori RNAi
siRNA deve essere caricato sugli effettori AGO per formare RISC, quindi indirizza i genomi virali complementari a PTGS o TGS nell'immunità innata antivirale basata su RNAi. Gli AGO effettori sono evolutivamente conservati e diffusi negli eucarioti, sebbene assenti nei procarioti [98]. È stato dimostrato che regolano una varietà di progressi biologici nello sviluppo delle piante e nella risposta delle piante agli stimoli ambientali [98-103], oltre alle loro funzioni nella difesa antivirale. Studi cristallografici hanno mostrato che gli AGO eucariotici canonici contengono cinque domini chiamati dominio N-terminale (N), dominio PIWI-ARGONAUTE-ZWILLE (PAZ), dominio medio (MID), un dominio PIWI e un dominio con funzione sconosciuta 1785 (DUF1785) [ 104,105] (figura 2).
Il dominio N può bloccare l'accoppiamento guida-bersaglio oltre la posizione 16, il dominio PAZ riconosce le 30 estremità dell'sRNA, il dominio MID ancora i 50 fosfati dell'sRNA, il dominio PIWI possiede l'attività della ribonucleasi per affettare l'RNA bersaglio [106-108] e è stato recentemente dimostrato che la funzione dei domini DUF1785 compromette i duplex siRNA e miRNA perfettamente abbinati [109]. Insieme, tutti i domini facilitano la corretta combinazione tra sRNA e RNA target per garantire un corretto silenziamento.
Dieci AGO sono codificati in Arabidopsis [110-113]. AGO1 e AGO2 sono i componenti principali dell'immunità antivirale mediata da RNAi contro i virus a RNA [100]. L'AGO1 funziona anche come effettore del miRNA per regolare tutti gli aspetti dello sviluppo delle piante modulando l'espressione dei geni endogeni [114-122]. Così i mutanti knockout ago1 sono letali. Pertanto, la funzione di AGO1 nell'immunità innata antivirale basata su RNAi è stata esaminata solo utilizzando mutanti ipomorfi di AGO1, come ago1-27, che mostravano ancora gravi difetti di sviluppo [123]. A differenza di AGO1, AGO2 non partecipa alla regolazione dello sviluppo delle piante e il mutante ago2 non mostra difetti di crescita e sviluppo; AGO2 può regolare esclusivamente la difesa delle piante in Arabidopsis. È stato riferito che AGO2 preferisce legare i vsiRNA con 50 terminali A e AGO1 preferisce U [124]. L'AGO2 è necessario per la resistenza a un ampio spettro di virus delle piante [56,125-128].
È stato anche riportato che l'attività catalitica di AGO2 era necessaria per l'attività antivirale locale e sistemica [125,127], mentre il mutante ago1 con attività catalitica intatta era suscettibile all'infezione virale [123]. AGO2 è anche coinvolto nella resistenza contro il batterio fitopatogeno Pseudomonas syringae [129], e AGO2 si lega a miR393b* e silenzia MEMB12 per modulare l'esocitosi delle proteine PR antimicrobiche e aumenta l'attività antivirale [129]. Pertanto, AGO1 e AGO2 possono svolgere ruoli distinti nella difesa antivirale nelle piante.
AGO4, AGO6 e AGO9 sono i principali effettori che funzionano nel percorso RdDM in Arabidopsis. È stato dimostrato che AGO4, AGO6 e AGO9 legano piccoli RNA interferenti eterocromatici da 24 nt (het-siRNA) e contribuiscono alla via RdDM [130,131]. È stato riferito che AGO4 ha combattuto principalmente l'aggressione dei virus del DNA attraverso la modulazione di RdDM, come riportato che i mutanti ago4 erano suscettibili all'infezione di BCTV a causa della ridotta ipermetilazione sul genoma di BCTV [47]. Sorprendentemente, i mutanti ago4 sono suscettibili a diversi virus RNA, come il virus della piega della rapa (TCV), il virus del mosaico del bambù (BaMV) e il virus del mosaico della Plantago asiatica (PlAMV) [132-135] attraverso un meccanismo indipendente dalla via RdDM [135 ].
Per quanto riguarda altri effettori AGO, AGO5 insieme ad AGO2 partecipano alla riduzione dell'infezione sistemica del virus della patata X (PVX), mentre AGO5 svolge solo un ruolo secondario quando AGO2 viene superato nelle foglie inizialmente infette [136]. AGO7 (noto anche come ZIP) è risultato essere un fattore cruciale durante l'infezione da TCV mediante il metodo di analisi della malattia basato su immagini [132]. AGO7 può anche legarsi con miR390 e mediare la biogenesi del siRNA endogeno [137]. AGO10 coopera con AGO1 e ha un ruolo ridondante nella protezione dei tessuti dell'infiorescenza dall'infezione del virus del mosaico di rapa (TuMV) [125], oltre alla sua funzione nella regolazione dello sviluppo del meristema apicale del germoglio mediante il legame di miR165/166 [138].
È interessante notare che più di 10 ortologhi AGO sono stati trovati in alcune colture importanti come il riso e il pomodoro, con 19 ortologhi nel riso e 15 nel pomodoro. Possono evolversi per avere funzioni differenziali nella difesa e nello sviluppo antivirale. Ad esempio, quando viene infettata dall'antivirus della striscia di riso (RSV), la proteina di rivestimento dell'RSV (CP) innesca l'accumulo di JA e sovraregola il fattore di trascrizione JAMYB reattivo a JA per legarsi direttamente al promotore AGO18 per attivare la trascrizione AGO18 [139]. AGO18 legherà e sequestrerà miR168, che aumenta l'accumulo di AGO1 per il processo antivirale [140]. D'altra parte, AGO18 lega preferenzialmente miR528 per sovraregolare l'accumulo di ROS e resistere all'infezione virale [141]. I nostri dati non pubblicati mostrano anche che alcuni ortologhi AGO nei pomodori possiedono funzioni differenziali rispetto all'Arabidopsis.
5. Soppressori virali di RNAi
Nella corsa agli armamenti di difesa e controdifesa tra piante ospiti e virus, i virus evolvono proteine VSR per inibire l'immunità antivirale innata basata su RNAi. I VSR mirano a diversi passaggi del percorso antivirale basato su RNAi per contrastare l'immunità antivirale conservata (Tabella 1) [142,143].


Una controazione molto comune dei VSR è impedire l'amplificazione del siRNA. Ad esempio, 2b di CMV, C1 di tomato yellow leaf curl China virus (TYLCCNV) e P6 di rice yellow stunt virus (RYSV) interferiscono con la biogenesi RDR1/6-dipendente del siRNA secondario [155,180,185]. Il V2 di tomato yellow leaf curl geminivirus (TYLCV), P2 di RSV e P4 di rice stripe mosaic virus (RMSV) interagiscono con SGS3 per inibire la biogenesi del siRNA secondario [181,182,189]. È stato anche scoperto che la proteina Geminivirus V2 interrompe l'interazione calmodulina-CAMTA3, che diminuisce l'espressione di RDR6 per ridurre la biogenesi del vsiRNA [97].
È stato scoperto che alcuni VSR ostacolano la percezione o il taglio del dsRNA virale. Ad esempio, CP di TCV potrebbe inibire l'attività di taglio di DCL4 [55] e P6 del virus del mosaico del cavolfiore (CaMV) interagisce con DRB4 per bloccare il legame del dsRNA [154]. Alcuni VSR, come gli NS del virus dell'avvizzimento maculato del pomodoro (TSWV) e l'Hc-Pro del virus della patata Y (PVY), si legano anche al lungo dsRNA virale, che potrebbe bloccare il rilevamento o l'elaborazione degli RNA virali da parte dei DCL. Alcuni altri VSR potrebbero mirare direttamente al vsiRNA per inibire l'immunità innata antivirale basata su RNAi. Ad esempio, P19, il noto VSR dei tombusvirus, lega e sequestra il vsiRNA, mentre l'RNasi III del crinivirus acrobatico clorotico della patata dolce (SPCSV) lega e media la degradazione del siRNA e l'HC-Pro del virus del mosaico giallo della zucchina (ZYMV) diminuisce il siRNA stabilità disturbando la metilazione del siRNA da parte di HEN1. Disturbare la funzione antivirale degli AGO effettori è un'altra strategia utilizzata da alcuni VSR. Ad esempio, P0 del potato leafroll virus (PLRV) può mediare la degradazione di AGO1 e 2b di CMV può interferire con AGO1 e AGO4 e disturbarne le funzioni.
Sorprendentemente, a differenza dei VSR di cui sopra che contrastano l'immunità innata antivirale basata su RNAi, sono stati trovati altri meccanismi per antagonizzare le risposte antivirali di alcuni VSR. Recentemente, uno studio ha dimostrato che VSR p19 può interagire con la recettore-like chinasi (RLK) BARELY ANY MERISTEM 1 (BAM1) e BAM2 per inibire il movimento da cellula a cellula del silenziamento dell'RNA [193,194]. VSR C4 del virus Guangdong dell'arricciamento delle foglie di pomodoro (ToLCGdV) può anche interagire con BAM1 per sopprimere il PTGS e invertire il TGS mediato dalla metilazione [195]. Inoltre, le prove accumulate indicano interazioni pianta-virus modulate dall'autofagia [196,197]. È stato riferito che il recettore del carico NEIGHBOR OF BRCA1 (NBR1) potrebbe bersagliare l'HC-Pro per sopprimere l'accumulo virale di TuMV [198]. Tuttavia, B, il VSR del virus del mosaico a strisce d'orzo (BSMV), ha preso di mira AUTOPHAGY PROTEIN7 (ATG7) per interrompere l'interazione ATG7-ATG8 e promuovere l'infezione virale [199].
Ora sappiamo che quasi tutti i virus delle piante, in particolare i virus delle piante patogeni, possiedono uno o più VSR. L'esistenza di VSR contribuisce alla riuscita aggressione di virus ed epidemie virali; ostacolano anche seriamente il nostro apprezzamento dell'indispensabile immunità antivirale innata nelle piante e in altri eucarioti.
For more information:1950477648nn@gmail.com


